Τα ανθρώπινα αμνιακά μεσεγχυματικά βλαστοκύτταρα ανακουφίζουν την AGVHD μετά από Allo-HSCT Ρυθμίζοντας τις αλληλεπιδράσεις μεταξύ της μικροχλωρίδας του εντέρου και της εντερικής ανοσίας
Oct 18, 2023
Αφηρημένη
Η οξεία νόσος μοσχεύματος έναντι ξενιστή (aGVHD) μετά από αλλογενή μεταμόσχευση αιμοποιητικών βλαστοκυττάρων αποτελεί μια από τις πιο ενοχλητικές προκλήσεις. Η δυσβίωση της μικροχλωρίδας του εντέρου μπορεί να προχωρήσει με aGVHD και τα μεσεγχυματικά βλαστοκύτταρα (MSCs) έχουν πολλά υποσχόμενες θεραπευτικές δυνατότητες για το aGVHD. Ωστόσο, το εάν τα hAMSC επηρεάζουν τη μικροχλωρίδα του εντέρου κατά τη διάρκεια του μετριασμού του aGVHD παραμένει άγνωστο. Αντίστοιχα, επιδιώξαμε να ορίσουμε τα αποτελέσματα και τους υποκείμενους μηχανισμούς των MSC που προέρχονται από ανθρώπινη αμνιακή μεμβράνη (hAMSCs) που ρυθμίζουν τη μικροχλωρίδα του εντέρου και την εντερική ανοσία στο aGVHD. Καθιερώνοντας εξανθρωπισμένα μοντέλα ποντικών aGVHD και θεραπεία με hAMSCs, διαπιστώσαμε ότι τα hAMSCs βελτίωσαν σημαντικά τα συμπτώματα του aGVHD, ανέτρεψαν την ανοσολογική ανισορροπία των υποσυνόλων Τ κυττάρων και των κυτοκινών και αποκατέστησαν τον εντερικό φραγμό. Επιπλέον, η ποικιλομορφία και η σύνθεση της μικροχλωρίδας του εντέρου βελτιώθηκαν κατά τη θεραπεία με hAMSCs. Η ανάλυση συσχέτισης του Spearman έδειξε ότι υπήρχε συσχέτιση μεταξύ της μικροχλωρίδας του εντέρου και των πρωτεϊνών σφιχτής σύνδεσης, των κυττάρων του ανοσοποιητικού επίσης και των κυτοκινών. Η έρευνά μας πρότεινε ότι τα hAMSCs ανακούφισαν την aGVHD προάγοντας την ομαλοποίηση της μικροχλωρίδας του εντέρου και ρυθμίζοντας τις αλληλεπιδράσεις μεταξύ της μικροχλωρίδας του εντέρου και του εντερικού φραγμού, της ανοσίας.

Οφέλη από το cistanche για τους άνδρες-ενισχύουν το ανοσοποιητικό σύστημα
Λέξεις-κλειδιά
Οξεία νόσος μοσχεύματος έναντι ξενιστή · Αμνιακά μεσεγχυματικά βλαστοκύτταρα · Εντερική μικροχλωρίδα · Εντερικός φραγμός · Εντερική ανοσία
Εισαγωγή
Το πρωταρχικό πλεονέκτημα της αλλογενούς μεταμόσχευσης αιμοποιητικών βλαστοκυττάρων (allo-HSCT) είναι η ισχυρή αντινεοπλασματική απόκριση λόγω του φαινομένου μοσχεύματος έναντι λευχαιμίας (GVL) που προκαλείται από την αναγνώριση πεπτιδίων που προκύπτουν από διαφορές στους γονιδιωματικούς πολυμορφισμούς μεταξύ ασθενών και δότης. Ωστόσο, η οξεία νόσος μοσχεύματος έναντι ξενιστή (aGVHD) περιστρέφεται γύρω από την ανάπτυξη βλάβης ιστού λήπτη λόγω της επίθεσης από τα αλλο-αντιδραστικά Τ κύτταρα δότη και αντιπροσωπεύει μια απειλητική για τη ζωή σημαντική επιπλοκή στο alloHSCT [1, 2]. Η μικροβιακή διαταραχή του εντέρου έχει αναφερθεί ότι προκαλεί φλεγμονώδεις αποκρίσεις και συσχετίζεται με ασθένειες που σχετίζονται με φλεγμονές [3, 4]. Πολυάριθμες μελέτες έχουν δείξει ότι οι διαταραχές στη μικροχλωρίδα του εντέρου είναι ένας ουσιαστικός παράγοντας που προκαλεί aGVHD μετά από allo-HSCT και αποτελούν νέο στόχο για θεραπεία [5, 6]. Συγκεκριμένα, η δυσβίωση της μικροχλωρίδας του εντέρου στην aGVHD χαρακτηρίζεται συνήθως από την απώλεια της βακτηριακής ποικιλότητας του εντέρου και την ανάπτυξη ευκαιριακών παθογόνων [6]. Στη γαστρεντερική GVHD, ο εξασθενημένος βλεννογόνος φραγμός ξεκινά την ενεργοποίηση των κυττάρων που παρουσιάζουν αντιγόνο ξενιστή και των Τ κυττάρων δότη με αποκορύφωμα τη διαφοροποίηση των Τ-κυττάρων κατά μήκος παραδειγμάτων παθογόνου τύπου{-1 και τύπου{-17 σε βάρος των ανεκτικών ρυθμιστικών Τ-κυττάρων μοτίβα κελιών [7]. Κυρίως με βάση την αλληλουχία του 16S ριβοσωμικού RNA (16S rRNA) έδειξε ότι πολλά είδη μικροχλωρίδας του εντέρου έχουν συσχετιστεί με GVHD και για παράδειγμα, τα κλωστρίδια που παράγουν βουτυρικό συσχετίζονται με τη διατήρηση της λειτουργίας του επιθηλιακού φραγμού και την εξασθένηση της οξείας GVHD [8. ]. Τα μεσεγχυματικά βλαστοκύτταρα (MSCs) έχουν κερδίσει τεράστια προσοχή την τελευταία δεκαετία λόγω των δυνατοτήτων αυτο-ανανέωσης και πολλαπλής διαφοροποίησης τους, καθώς και των ανοσοτροποποιητικών ιδιοτήτων [9]. Τα MSCs πιστεύεται ότι επιτρέπουν σε κατεστραμμένους ιστούς από ισορροπημένα φλεγμονώδη και αναγεννητικά μικροπεριβάλλοντα παρουσία έντονης φλεγμονής και έχουν χρησιμοποιηθεί ευρέως για τη θεραπεία διαταραχών που βασίζονται στο ανοσοποιητικό, στις οποίες η πιο επιτυχημένη κλινική εφαρμογή εμπλέκεται στη θεραπεία GVHD [10]. Τα ανθρώπινα αμνιακά μεσεγχυματικά βλαστοκύτταρα (hAMSCs) είναι περιγεννητικά βλαστοκύτταρα που διαθέτουν ικανότητα διαφοροποίησης που μοιάζει με εμβρυϊκά βλαστοκύτταρα και ανοσοτροποποιητικές ιδιότητες παρόμοιες με τα βλαστοκύτταρα ενηλίκων. Με κοινή χρήση φαινοτύπων παρόμοιων με τα τυπικά MSC, τα hAMSC έχουν γίνει μια πολλά υποσχόμενη πηγή βλαστοκυττάρων λόγω της ευκολίας, της μη επεμβατικής και της ασφάλειας απόκτησης ιστού, της άφθονης κυτταρικής απόδοσης και των πολύ χαμηλών ηθικών και ηθικών διαφωνιών σε σύγκριση με βλαστοκύτταρα από άλλες πηγές. Τα ανθρώπινα AMSC έχουν τα πλεονεκτήματα της χαμηλής ανοσογονικότητας και της μη ογκογονικότητας, καθιστώντας τα την ιδανική κυτταρική πηγή για κυτταρική θεραπεία [11, 12]. Πειράματα in vitro επιβεβαίωσαν ότι τα hAMSC εμφάνισαν υψηλότερη πολλαπλασιαστική ικανότητα και μεγαλύτερη μακροπρόθεσμη ικανότητα ανάπτυξης από τα MSC που προέρχονται από μυελό των οστών [13, 14]. Πολυάριθμες μελέτες έχουν δείξει ότι τα hAMSC έχουν τη δυνατότητα να βελτιώσουν πολλές φλεγμονώδεις ασθένειες, συμπεριλαμβανομένων της φλεγμονώδους νόσου του εντέρου, της οστεοαρθρίτιδας και της αυτοάνοσης νόσου [11]. Η πρόσφατη μελέτη μας έδειξε ότι τα hAMSCs βελτίωσαν την aGVHD ρυθμίζοντας την ισορροπία των Τ τελεστών και των κυττάρων Treg [15]. Ωστόσο, η επίδραση και ο μηχανισμός των hAMSCs στη μικροβιακή διαταραχή του εντέρου στο GVHD είναι άγνωστα. Εδώ, στοχεύουμε να διερευνήσουμε την πιθανή επίδραση των hAMSC στο aGVHD καθώς και στο μικροοικοσύστημα του εντέρου. Θα ήταν η πρώτη μελέτη που αποκάλυψε τη μικροχλωρίδα του εντέρου και τη συσχέτισή της με την εντερική ανοσία μετά τη θεραπεία της aGVHD από hAMSC.
Υλικά και μέθοδοι
Απομόνωση, καλλιέργεια και ταυτοποίηση hAMSCs
Τα hAMSC εκχυλίστηκαν όπως περιγράφηκε προηγουμένως [15]. Κύτταρα τρίτης διόδου (Ρ3) συλλέχθηκαν από αναγνώριση φαινοτύπου μέσω χρώσης με αντισώματα κατά CD34 (581, BD Pharmingen, ΗΠΑ), CD45 (HI30, BD Pharmingen, ΗΠΑ), HLA-DR (G46-6, BD Pharmingen , USA), CD11b (ICRF44, BD Pharmingen, USA), CD90 (5E10, BD Pharmingen, USA), CD73 (AD2, BD Pharmingen, USA) και CD105 (SN6, bioscience, USA), και στη συνέχεια αναλύθηκαν με κυτταρόμετρο ροής ( BD FACS Canto II). Τα κύτταρα ελέγχθηκαν για την πολυγραμμική διαφοροποίησή τους χρησιμοποιώντας ένα ειδικό μέσο επαγωγής (BGscience, China) και χρωματίστηκαν με Oil Red-O και Alizarin Red για λιπογένεση και οστεογονική διαφοροποίηση, αντίστοιχα. Για τα πειράματα χρησιμοποιήθηκαν hAMSCs στα αποσπάσματα 3 έως 6.

cistanche tubulosa-βελτίωση του ανοσοποιητικού συστήματος
Συλλογή Ανθρώπινων PBMCs
Δείγματα πλάσματος ελήφθησαν από υγιείς εθελοντές με γραπτή ενημερωμένη συγκατάθεση. Ανθρώπινα μονοπύρηνα κύτταρα περιφερικού αίματος (PBMCs) απομονώθηκαν από περιφερικό αίμα με φυγοκέντρηση πυκνότητας Ficoll-Hypaque (Tianjin Haoyang, Κίνα), πλύθηκαν με PBS, εναιωρήθηκαν σε ρυθμιστικό διάλυμα λύσης κόκκινου αίματος (Solarbio, Κίνα) στους 4 βαθμούς για 15 λεπτά. Ξεπλύνετε ξανά και μετά εναιωρήστε σε PBS για ένεση στην ουραία φλέβα σε ποντικούς NPG.
Ποντίκια
Ηλικίας 8-10 εβδομάδων και 25-30 g αρσενικά και θηλυκά ποντίκια NPG αγοράστηκαν από την Beijing Vitalstar Biotechnology Co., Ltd. και εκτράφηκαν υπό συνθήκες SPF σε κύκλο φωτός-σκότους 12 ωρών με σταθερή θερμοκρασία και υγρασία. Όλες οι διαδικασίες σε ζώα εγκρίθηκαν από την Επιτροπή Ιδρυματικής Φροντίδας και Χρήσης του Ιατρικού Πανεπιστημίου του Southern Medical University (Αρ. L2019132) σύμφωνα με τις κατευθυντήριες οδηγίες του Εθνικού Συμβουλίου Υγείας και Ιατρικής Έρευνας της Κίνας για τον πειραματισμό σε ζώα.
Ζωικό μοντέλο και θεραπεία οξείας GVHD
Το μοντέλο ποντικιού aGVHD καθιερώθηκε όπως περιγράφηκε προηγουμένως [15]. Για θεραπεία, 5 × 10⁵ hAMSCs ανά ποντικό (εδώ ομάδα hAMSCs) και PBS (εδώ ομάδα aGVHD) εγχύθηκαν μέσω της φλέβας της ουράς σε κάθε ποντικό την τρίτη ημέρα μετά τη μεταμόσχευση. Σε όλα τα μοντέλα ποντικών, τα ποντίκια ελέγχονταν κάθε δύο ημέρες για νοσηρότητα και αλλαγές βάρους. Κάθε ποντίκι βαθμολογήθηκε για παθολογικά χαρακτηριστικά όπως απώλεια βάρους, καμπουριασμένη στάση, αναστατωμένη γούνα, δερματικές βλάβες, μειωμένη κινητικότητα και διάρροια και στη συνέχεια βαθμολογήθηκε σύμφωνα με το κλινικό σύστημα βαθμολόγησης aGVHD προσαρμοσμένο από αυτό που περιγράφηκε αρχικά από τον Cooke [16]. Σε ορισμένες περιπτώσεις, τα ποντίκια στην ομάδα aGVHD υπέφεραν από σοβαρή aGVHD και τα ποντίκια στην ομάδα hAMSCs την τρίτη ημέρα μετά τη θεραπεία θυσιάστηκαν για τη συλλογή του περιφερικού αίματος και των οργάνων-στόχων, συμπεριλαμβανομένων των συκωτιών, σπλήνας, πνευμόνων και εντέρων. Τα περιττώματα αυτών των ποντικών συλλέχθηκαν πριν από τη θυσία.
Επισημασμένα με GFP hAMSCs και in vivo Tracing
Τα επισημασμένα με GFP hAMSCs ιδρύθηκαν και ταυτοποιήθηκαν όπως περιγράφηκε προηγουμένως [15]. Εν συντομία, διαμολύναμε το γονίδιο της πράσινης πρωτεΐνης φθορισμού (GFP) σε hAMSCs με φακοϊό ως φορέα. 5× 10⁵ σημασμένα με GFP hAMSCs εναιωρημένα σε 500 μL PBS εγχύθηκαν σε ποντίκια aGVHD μέσω της φλέβας της ουράς. Μετά από 24 ώρες και 72 ώρες, τα ποντίκια υποβλήθηκαν σε ευθανασία για τη συλλογή των εντέρων και στη συνέχεια δημιουργήθηκαν κατεψυγμένα τμήματα. Η αντιχρώση DAPI χρησιμοποιήθηκε για τη διάκριση των κυττάρων-δεκτών.
Ιστοπαθολογική Αξιολόγηση
Τα όργανα-στόχοι aGVHD συλλέχθηκαν τη στιγμή της νεκροψίας και στη συνέχεια υποβλήθηκαν σε επεξεργασία σε τεμάχια ενσωματωμένα σε παραφίνη για να δημιουργηθούν τομές πάχους 5-μm για χρώση με αιματοξυλίνη και ηωσίνη (H&E). Οι ιστολογικές βαθμολογίες αξιολογήθηκαν με βάση την καταστροφή της δομής των ιστών και τη διήθηση των λεμφοκυττάρων [17]. Για την ανοσοϊστοχημεία, τα τμήματα αποπαραφνίστηκαν, επανυδατώθηκαν και υποβλήθηκαν σε επεξεργασία με 3% H2O2 σε μεθανόλη για 20 λεπτά για να απενεργοποιηθεί η δραστηριότητα της ενδογενούς υπεροξειδάσης. Στη συνέχεια οι τομές υποβλήθηκαν σε ανάκτηση αντιγόνου και υποβλήθηκαν σε αγωγή με λευκωματίνη ορού για 1 ώρα. Στη συνέχεια, οι τομές επωάστηκαν με αντισώματα αντι-ανθρώπινου CD45 κουνελιού (EP322Y, Abcam, Αγγλία) ή αντισώματα ZO{-1 ((EPR19945-296, Abcam, Αγγλία) για 1 ώρα στους 37 βαθμούς. Η δέσμευση Τα αντισώματα ανιχνεύθηκαν με συζευγμένο με HRP δευτερογενές αντίσωμα (Genentech, ΗΠΑ) και οπτικοποιήθηκαν με DAB. Η θετική περιοχή αναλύθηκε με την εικόνα J.

φυτικό κιστανάκι που ενισχύει το ανοσοποιητικό σύστημα
16S rRNA αλληλούχιση από κόπρανα μικροχλωρίδα
Το γονιδιωματικό DNA κοπράνων εξήχθη από 0, 1 g κατεψυγμένα δείγματα κοπράνων χρησιμοποιώντας κιτ DNA κοπράνων EZNA® (Omega BioTek, Norcross, GA, ΗΠΑ) σύμφωνα με το πρωτόκολλο του κατασκευαστή. Χρησιμοποιώντας το γονιδιωματικό DNA ως πρότυπο, χρησιμοποιήθηκαν ειδικοί εκκινητές (338F: 5′-ACTCCTACGGGAGGCAGCA-3′ και 806R: 5′-GGACTACHVGGGTWTCTAAT-3′) με γραμμικούς κώδικες και PremixTaq (TaKaRa, China) τις υπερμεταβλητές περιοχές V3-V4 του βακτηριακού γονιδίου 16S rRNA. Μετά την ενίσχυση και τον καθαρισμό, ολόκληρο το γονιδίωμα του δείγματος αλληλουχήθηκε στην πλατφόρμα προσδιορισμού αλληλουχίας υψηλής απόδοσης Illumina Hiseq ή Miseq από την Magigene Technology Co., Ltd. (Guangzhou, Κίνα) για τη λήψη ακατέργαστων δεδομένων σε μορφή FASTQ. Οι αναλύσεις δεδομένων αλληλουχίας πραγματοποιήθηκαν κυρίως χρησιμοποιώντας την πλατφόρμα Magichand.
Κυτταρομετρική Ανάλυση Ροής
Τα όργανα στόχοι aGVHD και το περιφερικό αίμα ποντικών ελήφθησαν και παρασκευάστηκαν σε εναιώρημα μονοκυττάρου. Τα κύτταρα χρωματίστηκαν με μονοκλωνικά αντισώματα κατά CD3 (UCHT1, Biolegend, ΗΠΑ), CD4 (RPA-T4, Invitrogen, ΗΠΑ), CD8 (RPA-T8, Biolegend, ΗΠΑ), CD25 (BC96, Biolegend, ΗΠΑ) ή ταιριάστηκαν με ισότυπο έλεγχος IgG (eBioscience, ΗΠΑ) για 30 λεπτά σε θερμοκρασία δωματίου στο σκοτάδι. Στη συνέχεια τα κύτταρα υποβλήθηκαν σε επεξεργασία με ρυθμιστικό διάλυμα λύσης (BD Pharm Lyse™) στους 4 βαθμούς στο σκοτάδι για 15 λεπτά. Η ενδοκυτταρική χρώση Foxp3 (236A/E7, Invitrogen, Η.Π.Α.) πραγματοποιήθηκε σύμφωνα με τις συστάσεις του κατασκευαστή (Κιτ διαλύματος Fixation/Permeabilization; eBioscience). Στη συνέχεια πραγματοποιήθηκαν πολυχρωματικές κυτταρομετρικές αναλύσεις ροής σε κυτταρόμετρο ροής.
Ποσοτικοποίηση Κυτοκινών
Τα επίπεδα των κυτοκινών στον ορό και το υπερκείμενο ιστού των ποντικών προσδιορίστηκαν χρησιμοποιώντας το κιτ κυτοκίνης Human Th1/Th2/Th17 Cytometric Bead Array (CBA) (BD Pharmingen, ΗΠΑ) σύμφωνα με τις οδηγίες του κατασκευαστή. Εν συντομία, 50 μL από καθένα από τα υπερκείμενα δείγματα επωάστηκαν με 50 μL των μικτών σφαιριδίων σύλληψης ανθρώπινης κυτοκίνης Th1/Th2/Th17 και 50 μL του ανθρώπινου αντιδραστηρίου ανίχνευσης Th1/Th2/Th17 PE σε θερμοκρασία δωματίου στο σκοτάδι και στη συνέχεια εναιωρήθηκαν. για ανάλυση κυτταρομετρίας ροής 3 ώρες αργότερα.
Ποσοτική PCR σε πραγματικό χρόνο
Ολικό RNA εκχυλίστηκε από ιστό παχέος εντέρου ποντικού μετά από απομόνωση χρησιμοποιώντας αντιδραστήριο Trizol (TaKaRa, Κίνα). Ολικό RNA χρησιμοποιήθηκε ως εκμαγείο για την αντιστροφή της μεταγραφής του cDNA. -ακτίνη χρησιμοποιήθηκε ως εσωτερική αναφορά. Η έκφραση του mRNA μετρήθηκε με qPCR χρησιμοποιώντας τους ακόλουθους εκκινητές: ZO-1-F, 5'-ACCACCAACCCGAGAGAAGAC-3' και ZO- 1-R, 5'-CAGGAGTCATGGACGCACA-3 '; Occludin-F, 5'-TTGAAAGTCCACCTCCTTACAGA-3' και OccludinR, 5'-CCGGATAAAAAGAGTACGCTGG-3'; -actin-F, 5'-GGCTGTATTCCCCTCCATCG-3' και -actin-R, 5'-CCAGTTGGTAACAATGCCATGT-3'. Η μέθοδος 2-ct χρησιμοποιήθηκε για τη μέτρηση των επιπέδων έκφρασης RNA.
Ενζυμική Ανοσορροφητική Ανάλυση (ELISA)
Τα επίπεδα D-LA και DAO στο πλάσμα μετρήθηκαν χρησιμοποιώντας κιτ ELISA (Jingmei, Κίνα) σύμφωνα με τις οδηγίες του κατασκευαστή. Εν συντομία, τα συλλεγμένα υπερκείμενα του πλάσματος τοποθετήθηκαν σε 96-πηγαδάκια επικαλυμμένα με καλά ειδικά αντίσωμα, αντίστοιχα. Η απορρόφηση καταγράφηκε στα 450 nm χρησιμοποιώντας συσκευή ανάγνωσης μικροπλακών (Multiskan ΜΚ3, Thermo Fisher Scientific).
Στατιστική ανάλυση
Τα δεδομένα παρουσιάστηκαν ως μέσος όρος ± SD. Πραγματοποιήθηκε t-test ανεξάρτητου δείγματος και οπτικοποιήθηκε χρησιμοποιώντας GraphPad Prism8.0. Οι αναλύσεις δεδομένων αλληλουχίας 16S rRNA πραγματοποιήθηκαν χρησιμοποιώντας την πλατφόρμα Magichand (http://cloud.magigenecom/). Η ανάλυση συσχέτισης μεταξύ της μικροχλωρίδας του εντέρου και της ανοσίας διεξήχθη από πακέτα R (v3.6.3) για να εμφανιστεί ένας πίνακας συσχέτισης. Τιμές P<0.05 were considered statistically significant. * p<0.05, ** p<0.01, *** p<0.001, **** p<0.0001, n.s. not signifcant.
Αποτελέσματα
Ταυτοποίηση hAMSC
Τα hAMSC εμφάνισαν μορφολογία πολυγώνου ή παρόμοια με ινοβλάστες σε καλλιέργεια (Εικ. 1Α) και ήταν έντονα θετικά για την επιφανειακή έκφραση των MSC-ειδικών δεικτών CD90, CD105 και CD73, αλλά αρνητικά για CD34, CD45, HLA-DR και CD11b (Εικ. . 1C). Όσον αφορά τη διαφοροποίηση πολλαπλών γραμμών, τα αποτελέσματά μας έδειξαν ότι τα hAMSC έδειξαν λιποκυττάρωση και οστεοβλαστική διαφοροποίηση (Εικ. 1Β).
Τα hAMSCs Μετριάζουν σημαντικά τα συμπτώματα aGVHD σε ποντίκια
Αρχικά αξιολογήσαμε τη θεραπευτική επίδραση των hAMSC στο aGVHD. Σε σύγκριση με την ομάδα aGVHD, τα hAMSCs βελτίωσαν σημαντικά την aGVHD, όπως αποδεικνύεται από την σημαντικά μειωμένη απώλεια βάρους (Εικ. 2Β) και τη μειωμένη κλινική βαθμολογία aGVHD (Εικ. 2C). Επιπλέον, η ομάδα hAMSCs είχε σημαντικά υψηλότερο ποσοστό επιβίωσης σε σύγκριση με ποντίκια aGVHD (Εικ. 2D). Η παθολογική ιστολογική ανάλυση έδειξε ότι το aGVHD προκάλεσε σοβαρή βλάβη ιστού και διήθηση λευκοκυττάρων. Τα hAMSCs, όπως καταδεικνύεται από την Η&Ε, εξασθενούσαν τη διάσπαση του ιστού και τη διήθηση εξωγενών Τ κυττάρων σε όργανα στόχους aGVHD (Εικ. 2Ε). Με συνέπεια, τα αποτελέσματα της IHC επιβεβαίωσαν επίσης ότι τα hAMSC βελτίωσαν τις μη φυσιολογικές παθολογικές εκδηλώσεις (Εικ. 2F). Αυτά τα αποτελέσματα υποδηλώνουν ότι τα hAMSCs είχαν τη δυνατότητα να βελτιώσουν τα συμπτώματα aGVHD σε ποντικούς aGVHD.
Τα hAMSC επηρέασαν την ανοσία του ξενιστή σε ποντίκια aGVHD
Για να κατανοήσουμε τους υποκείμενους ανοσοτροποποιητικούς μηχανισμούς με τους οποίους τα hAMSCs μειώνουν το aGVHD, μετρήσαμε την ενεργοποίηση και την επέκταση των Τ κυττάρων στο περιφερικό αίμα και στα όργανα-στόχους. Η ανάλυση κυτταρομετρίας ροής αποκάλυψε ότι τα hAMSCs ανέστειλαν αξιοσημείωτα τον αριθμό των CD3+CD4+T και CD3+CD8+T κυττάρων στο αίμα και στα όργανα-στόχους (Εικ. 3Α, ΣΙ). Επιπλέον, η αναλογία των CD4+CD25+Foxp3+Tregs στο αίμα και στα όργανα-στόχους ποντικών στην ομάδα hAMSCs ήταν σημαντικά υψηλότερη από αυτή στην ομάδα aGVHD (Εικ. 3C) . Στη συνέχεια διερευνήσαμε την επίδραση των hAMSC στο προφίλ κυτοκίνης (Εικ. 4). Η χορήγηση hAMSC οδήγησε σε προφανή μείωση των επιπέδων IL-17A, IFN-, TNF, IL{-6 και IL-2 στα όργανα-στόχους και στο αίμα σε σύγκριση με εκείνα της ομάδας aGVHD, εκτός από το επίπεδο TNF στον σπλήνα. Στο μεταξύ, εκτός από τα επίπεδα IL-10 στο ήπαρ, τα ποντίκια που έλαβαν θεραπεία με hAMSC εμφάνισαν σημαντικά αυξημένα επίπεδα IL-10 και IL-4 στα όργανα-στόχους και στο αίμα. Συνολικά, τα hAMSC έπαιξαν προστατευτικό ρόλο στην aGVHD αντιστρέφοντας την ανοσολογική ανισορροπία των υποσυνόλων Τ κυττάρων και την καταιγίδα κυτοκινών.

Οφέλη από το σωληνίσκο cistanche- ενίσχυση του ανοσοποιητικού συστήματος
Κάντε κλικ εδώ για να δείτε τα προϊόντα Cistanche Enhance Immunity
【Ζητήστε περισσότερα】 Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
hAMSCs Βελτιώθηκε η βλάβη του εντερικού φραγμού σε ποντίκια aGVHD
Για να διερευνήσουμε εάν τα hAMSC θα μπορούσαν να επιδιορθώσουν τον εντερικό φραγμό στο aGVHD, πρώτα παρατηρήσαμε εάν τα hAMSC θα μπορούσαν να μεταναστεύσουν στα έντερα. Όπως φαίνεται στο Σχήμα 5Α, τα σημασμένα με GFP hAMSCs ανιχνεύθηκαν στα έντερα μετά την ένεση σε hAMSCs και μπορούσαν να εμβολιαστούν και να διεισδύσουν στα έντερα. Στη συνέχεια σχεδιάσαμε μια ιστοπαθολογική αξιολόγηση του ιστού του λεπτού εντέρου. Στην ομάδα aGVHD, το έντερο ήταν διαβρωμένο και νεκρωτικό, οι εντερικές λάχνες καταστράφηκαν προφανώς, οι λάχνες έσπασαν και μαζικά λευκοκύτταρα διείσδυσαν στον εντερικό βλεννογόνο, τον υποβλεννογόνιο χιτώνα και το lamina propria. Οι εντερικές λάχνες τοποθετούνταν τακτικά και δεν υπήρξε θραύση της εντερικής λάχνης ή αποκόλληση του επιθηλίου των λαχνών μετά από θεραπεία με hAMSCs (Εικ. 5Β). Διήθηση ανθρώπινων λεμφοκυττάρων παρατηρήθηκε επίσης με ανοσοϊστοχημεία στα έντερα στην ομάδα aGVHD, ενώ η θεραπεία με hAMSCs μπορούσε να μειώσει τη διήθησή τους (Εικ. 5C). Για να αξιολογήσουμε την προστατευτική επίδραση των hAMSC στην ακεραιότητα του εντερικού βλεννογόνου, πραγματοποιήσαμε ανοσοϊστοχημεία για να ανιχνεύσουμε την επίδραση στο ZO-1. Στην ομάδα θεραπείας με hAMSCs, το επίπεδο έκφρασης της πρωτεΐνης σφιχτής σύνδεσης ZO-1 αυξήθηκε σημαντικά σε σύγκριση με την ομάδα aGVHD (Εικ. 5D). Εξετάσαμε επίσης τα επίπεδα έκφρασης mRNA των εντερικών πρωτεϊνών στενής σύνδεσης (TJs) και τα επίπεδα στο πλάσμα του D-γαλακτικού οξέος (D-LA) και της οξειδάσης της διαμίνης (DAO) για να προσδιορίσουμε τη λειτουργία του εντερικού φραγμού και την εντερική διαπερατότητα. Όταν χορηγούνται ενδοφλεβίως, τα hMASC θα μπορούσαν να αυξήσουν σημαντικά τα επίπεδα έκφρασης του mRNA του ZO-1 και του Occludin, των βασικών πρωτεϊνών των TJs (Εικ. 5E, F), ενώ μειώνουν τα επίπεδα των D-LA και DAO (Εικ. 5G, Η). Ως εκ τούτου, όταν εμφανίστηκε aGVHD, ο εντερικός φραγμός καταστράφηκε με τη μείωση των πρωτεϊνών του εντερικού στεγανού συνδέσμου και την αύξηση της εντερικής διαπερατότητας. Εν τω μεταξύ, τα hAMCSs θα μπορούσαν να αντιστρέψουν σημαντικά τη διαταραχή του εντερικού φραγμού.
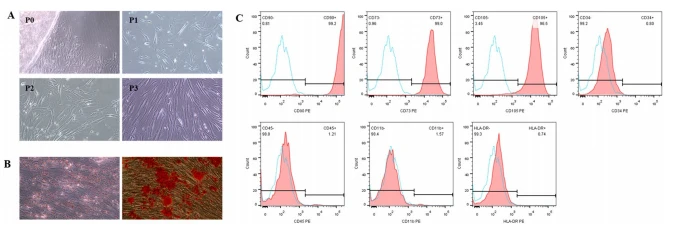
Εικ. 1 Φαινοτυπικός και λειτουργικός χαρακτηρισμός των hAMSCs. (Α) Αντιπροσωπευτικές μικρογραφίες των hAMSC από το πέρασμα 0 έως το 3 (χωρίς χρώση, 100×). (Β) Ικανότητα διαφοροποίησης πολλαπλών γραμμών των hAM SC. Η λιπογόνος διαφοροποίηση των hAMSC (αριστερά) χρωματίστηκε με Oil Red-O και η οστεοβλαστική διαφοροποίηση των hAMSC (δεξιά) χρωματίστηκε με Alizarin Red (χρώση, 100×). (Γ) Ανάλυση κυτταρομετρίας ροής που υποδεικνύει θετικά hAMSC για CD90, CD105 και CD73 ενώ αρνητικά για CD34, CD45, CD11b και HLA-DR

Εικ. 2 hAMSCs ανακούφισαν το aGVHD σε ποντικούς NPG. (Α) Ένα σχηματικό διάγραμμα που απεικονίζει το πρόγραμμα χορήγησης των hAMSCs σε μοντέλα ποντικών aGVHD. (Β) Αλλαγές σωματικού βάρους σε διαφορετικές ομάδες (n=10). (Γ) κλινική βαθμολογία aGVHD (βάσει της απώλειας βάρους, της καμπουριασμένης στάσης, της φουσκωμένης γούνας, των δερματικών αλλοιώσεων, της μειωμένης κινητικότητας και της διάρροιας) σε διαφορετικές ομάδες (n=10). (Δ) Επιβίωση μεταξύ διαφορετικών ομάδων (n=10). (Ε) Αντιπροσωπευτικές μικροσκοπικές εικόνες χρώσης Η&Ε (400×) και ιστολογική βαθμολογία (με βάση την καταστροφή της δομής των ιστών και τη διόγκωση των λεμφοκυττάρων) (n=4). (ΣΤ) Αντιπροσωπευτικές μικροσκοπικές εικόνες ανοσοϊστοχημείας (400×) και το ποσοστό της θετικής περιοχής CD45 (n=4). Οι τιμές παρουσιάστηκαν ως μέσος όρος±SD

Εικ. 3 hAMSCs ανέστειλαν την επέκταση των Τ κυττάρων δότη ενώ ενίσχυσαν τη δημιουργία ή την επέκταση Tregs in vivo. (Α) Ανάλυση κυτταρομετρίας ροής των CD3+CD4+Τ κυττάρων(n=6), (B) Ανάλυση κυτταρομετρίας ροής του CD3+CD8+ Τ κύτταρα(n=6), (C) Ανάλυση κυτταρομετρίας ροής του CD4+CD25+Foxp3+Tregs (n=6). Οι τιμές παρουσιάστηκαν ως μέσος όρος±SD

Εικ. 4 hAMSCs μειώνουν τις προφλεγμονώδεις κυτοκίνες IL-17A, IFN-, TNF, IL-6, IL-2 και ρυθμίζουν προς τα πάνω τις αντιφλεγμονώδεις κυτοκίνες IL-10 και IL -4 in vivo (n=5). Οι τιμές παρουσιάστηκαν ως μέσος όρος±SD
Εναλλαγές μικροχλωρίδας του εντέρου μετά από θεραπεία hAMSCs σε ποντίκια aGVHD
Η αλληλουχία 16S rRNA πραγματοποιήθηκε σε DNA βακτηρίων κοπράνων που απομονώθηκε από διαφορετικές ομάδες ποντικών. Οι δείκτες -ποικιλομορφίας, συμπεριλαμβανομένων των δεικτών OUT, Chao1 και Shannon, εκδήλωσαν παρόμοιες τάσεις και τα ποντίκια που έλαβαν θεραπεία με hAMSCs είχαν μια μικροχλωρίδα με σημαντικά υψηλότερη -ποικιλομορφία σε σχέση με αυτή της ομάδας aGVHD (Εικ. 6Α). Η ανάλυση κύριας συντεταγμένων (PCoA) με βάση την απόσταση Un σταθμισμένης-unifrac, την απόσταση Μανχάταν και τη μετρική απόσταση Bray-Curtis, έδωσε διασκορπισμένα σημεία δεδομένων στα διαγράμματα των δύο ομάδων, παρά το γεγονός ότι η διαφορά δεν ήταν σημαντική (Εικ. 6Β). Στη συνέχεια, αξιολογήσαμε το τοπίο της μικροχλωρίδας του εντέρου για να διερευνήσουμε περαιτέρω τη διαφορά δυνητικής σύνθεσης μεταξύ των δύο ομάδων. Υπολογίστηκαν συνολικά 773 OTU και η ομάδα hAMSC είχε υψηλότερα OTU σε σύγκριση με την ομάδα aGVHD (Εικ. 6C). Όσον αφορά τη βακτηριακή σύνθεση σε επίπεδο φυλής, οι Firmicutes και Bacteroidetes ήταν οι δύο πιο κυρίαρχες ομάδες (Εικ. 6D). Οργανώσαμε επίσης έναν συγκριτικό χάρτη θερμότητας για την ανάλυση της μικροχλωρίδας του εντέρου μεταξύ των δύο ομάδων (Εικ. 6Ε). Το γένος Odoribacter και Ruminococcus_1 εμφάνισε σχετικά υψηλή αφθονία στην ομάδα hAMSC, τα οποία είναι σημαντικά μικρόβια για τη διατήρηση της εντερικής ομοιόστασης (Εικ. 6F, G). Για να επιβεβαιώσουμε ποιο βακτήριο άλλαξε από τη θεραπεία με hAMSCs και με τη σειρά του επηρέασε την εξέλιξη της νόσου έναντι του aGVHD, πραγματοποιήσαμε συγκρίσεις κατηγορίας υψηλών διαστάσεων χρησιμοποιώντας τη γραμμική διακριτική ανάλυση (LDA) του μεγέθους επίδρασης (LEfSe) που ανίχνευσε σημαντικές διαφορές στην επικράτηση των βακτηριακών κοινοτήτων μεταξύ τις δύο ομάδες. Όπως φαίνεται στο (Εικ. 6Η, Ι), οι Streptococcaceae (η οικογένεια και το γένος Streptococcus), Paludibacteraceae, F0058 και Delftia ήταν οι βασικοί τύποι βακτηρίων που συνεισέφεραν στη δυσβίωση της μικροχλωρίδας του εντέρου στην ομάδα aGVHD. Παρόλα αυτά, τα ευεργετικά βακτήρια Lachnospiraceae, Roseburia, Ruminococcaceae, Ruminiclostridium, Oscillibacter και Clostridia (η τάξη και η τάξη Clostridiales) εμφάνισαν σχετικό εμπλουτισμό στην ομάδα hAMSCs, που μπορεί να σχετίζεται με την ανακούφιση του aGHD που προκαλείται από hAMSCs. Συλλογικά, η ποικιλομορφία και η σύνθεση της μικροχλωρίδας του εντέρου βελτιώθηκαν μετά τη χορήγηση hAMSCs και κινήθηκαν σε μια συνολική τάση που ήταν ευεργετική για τον οργανισμό.

cistanche tubulosa-βελτίωση του ανοσοποιητικού συστήματος
Τα hAMSC ρύθμισαν τις αλληλεπιδράσεις μεταξύ της μικροχλωρίδας του εντέρου και της εντερικής ανοσίας
Για να κατανοηθεί η πιθανή σχέση μεταξύ της μικροχλωρίδας του εντέρου και του φραγμού του εντερικού βλεννογόνου, οι συσχετίσεις μεταξύ των TJ και της μικροχλωρίδας του εντέρου σε επίπεδο γένους αναλύθηκαν με την ανάλυση συσχέτισης του Spearman. Όπως φαίνεται στην Εικ. 7, υπήρχε θετική σχέση μεταξύ του ZO-1 και των ωφέλιμων βακτηρίων, Ruminococcaceae_UCG.014, Muribaculum, Ruminococcus_1 και Ruminiclostridium_9. Η σχετική αφθονία των ωφέλιμων βακτηρίων, Roseburia, Odoribacter, Ruminococcus_1 και Ruminococcaceae_UCG.014 έδειξε δραματικά θετικές συσχετίσεις με το Occludin. Στη συνέχεια, πραγματοποιήσαμε μια ανάλυση συσχέτισης μεταξύ της μικροχλωρίδας του εντέρου και του εντερικού ανοσοποιητικού φραγμού με τη μέθοδο συσχέτισης κατάταξης του Spearman (Εικ. 7). Παρατηρήσαμε ότι η αύξηση των Roseburia, Muribaculum και Ruminococcus _1 συσχετίστηκε αρνητικά με το ποσοστό των CD3 +CD4+Τ κυττάρων. Επιπλέον, η αύξηση των ωφέλιμων βακτηρίων, Ruminococcus{_1 και Ruminiclostridium _9, συσχετίστηκε θετικά με το ποσοστό των Tregs ενώ συσχετίστηκε αρνητικά με την IL{-17. Η αφθονία του Lactobacillus και του Candidatus_Arthromitus συσχετίστηκε αρνητικά με την IFN- . Υπήρχε αρνητική συσχέτιση μεταξύ της αφθονίας του Muribaculum και της IL-2. Η αύξηση της αφθονίας του Candidatus_Saccharimonas και η μείωση στην Escherichia. Η αφθονία των σιγκέλλων συσχετίστηκε θετικά με το επίπεδο IL-10 (Εικ. 7). Τα αποτελέσματα της ανάλυσης συσχέτισης έδειξαν ότι τα hAMSC βελτίωσαν το φλεγμονώδες περιβάλλον του ξενιστή και ρύθμισαν την εντερική ομοιόσταση, η οποία μπορεί να σχετίζεται με τη ρύθμιση της μικροβιακής χλωρίδας του εντέρου, και κατά συνέπεια απέτρεψαν το aGVHD.

Εικ. 5 hAMSCs βελτίωσαν τη δυσλειτουργία του εντερικού φραγμού σε ποντικούς aGVHD. (Α) Επισημασμένα με GFP hAMSCs διείσδυσαν στα έντερα. (Β) Αντιπροσωπευτικές μικροσκοπικές εικόνες χρώσης εντέρων με Η&Ε (400×) και ιστολογική βαθμολογία (με βάση την καταστροφή της δομής του ιστού και τη διήθηση των λεμφοκυττάρων) (n=4). (Γ) Αντιπροσωπευτικές μικροσκοπικές εικόνες ανοσοϊστοχημείας (400×) των εντέρων και το ποσοστό της θετικής περιοχής CD45 (n=4). (Δ) Αντιπροσωπευτικές μικροσκοπικές εικόνες ανοσοϊστοχημείας (400×) των εντέρων και το ποσοστό της θετικής περιοχής ZO-1 (n=4). (Ε) επίπεδα έκφρασης mRNA του ZO-1 και του Occludin (n=3). (F) Επίπεδα D-LA και DAO στο πλάσμα (n=4).Οι τιμές παρουσιάστηκαν ως μέσος όρος±SD
Συζήτηση
Η προηγμένη μικροβιακή ανάλυση έχει παράσχει νέες γνώσεις για τις πολύπλοκες αλληλεπιδράσεις μεταξύ του ξενιστή και της μικροχλωρίδας του εντέρου [18]. Η μικροχλωρίδα του εντέρου θα μπορούσε να μεταβληθεί μετά από allo-HSCT και συνδέεται στενά με την aGVHD, υποδηλώνοντας ότι η μικροχλωρίδα του εντέρου μπορεί να είναι ένας νέος στόχος για τη θεραπεία με aGVHD [5]. Πολυάριθμες μελέτες, συμπεριλαμβανομένης της πρόσφατης μελέτης μας, έχουν διερευνήσει και επιβεβαιώσει τη θεραπευτική επίδραση των MSCs στην aGVHD [15, 19, 20]. Ωστόσο, η επίδραση στη μικροχλωρίδα του εντέρου κατά τη διάρκεια αυτής της περιόδου παραμένει ασαφής. Σε αυτή τη μελέτη, διερευνήσαμε την επίδραση των hAMSC στο aGVHD και τους πιθανούς μηχανισμούς σε αυτό in vivo. Σε συμφωνία με προηγούμενες μελέτες [15, 21-23], τα αποτελέσματά μας έδειξαν ότι τα hAMSC έχουν ευνοϊκή προστατευτική επίδραση στο aGVHD σε ποντίκια, όπως αποδεικνύεται από τα εξασθενημένα συμπτώματα του aGVHD και την παρατεταμένη επιβίωση. Δείξαμε επίσης ότι τα hAMSC παρουσίασαν ανοσοκατασταλτική δράση μέσω της μείωσης της επέκτασης των Τ κυττάρων του δότη, ενώ ενίσχυαν τη δημιουργία Tregs στην aGVHD. Εν τω μεταξύ, τα hAMSCs θα μπορούσαν να μειώσουν τις προφλεγμονώδεις κυτοκίνες και να ρυθμίσουν προς τα πάνω τις αντιφλεγμονώδεις κυτοκίνες in vivo, έτσι ώστε να αναστείλουν τις φλεγμονώδεις αποκρίσεις. Ο εντερικός φραγμός, μια πυκνή δομή που αποτελείται από μια μονοστοιβάδα εντερικών επιθηλιακών κυττάρων, διατηρεί την ακεραιότητά του και αποτρέπει τη μετατόπιση της μικροχλωρίδας του αυλού σε υγιή κατάσταση [24]. Κατά τη διάρκεια του allo-HSCT, τα συντάγματα προετοιμασίας βλάπτουν τον εντερικό φραγμό, που είναι το αρχικό βήμα στην ανάπτυξη του aGVHD, καθώς επιτρέπει τη μετατόπιση βακτηρίων κατά μήκος του φραγμού και οδηγεί σε διαταραχή της εντερικής ανοσολογικής ομοιόστασης [24, 25]. Τα συσσωρευμένα στοιχεία καταδεικνύουν ότι τα MSC διαθέτουν την ικανότητα επιδιόρθωσης ιστού, η οποία έχει αποδειχθεί ότι επιδιορθώνει την ακεραιότητα του εντερικού φραγμού σε ποντίκια κολίτιδας [26]. Οι πρωτεΐνες στενής σύνδεσης, συμπεριλαμβανομένων των ZO-1 και Occludin, έχουν ουσιαστικό ρόλο στη λειτουργία του εντερικού φραγμού και η μετατόπιση της μικροχλωρίδας του εντέρου πάνω από τον εξασθενημένο εντερικό φραγμό προκαλεί φλεγμονή [27]. Το D-LA προέρχεται από εντερικά βακτήρια και το DAO συγκεντρώνεται κυρίως στον εντερικό βλεννογόνο. Έτσι, οι υψηλές συγκεντρώσεις D-LA και DAO στο πλάσμα μπορεί εν μέρει να αντικατοπτρίζουν αλλαγές στην εντερική διαπερατότητα και στη λειτουργία του εντερικού φραγμού [28]. Προς το παρόν, διαπιστώσαμε ότι τα επίπεδα έκφρασης των TJ αυξήθηκαν δραματικά μετά τη χορήγηση hAMSCs, ενώ τα επίπεδα στο πλάσμα των D-LA και DAO μειώθηκαν σημαντικά, υποδεικνύοντας ότι τα hAMSCs μπορούσαν να βελτιώσουν τη δυσλειτουργία του εντερικού φραγμού και την ανάκτηση της εντερικής διαπερατότητας. Το έντερο είναι ένα από τα όργανα που επηρεάζονται περισσότερο από το aGVHD και η έρευνα έχει επισημάνει ότι το βακτήριο, ιδιαίτερα η μικροχλωρίδα του εντέρου, παίζει κεντρικό ρόλο στην παθογένεση και την ανάπτυξη του aGVHD [5, 6]. Όπως αναφέρθηκε σε προηγούμενες μελέτες, η απώλεια της βακτηριακής ποικιλομορφίας των ασθενών με αλλο HSCT συσχετίστηκε με αυξημένη θνησιμότητα από aGVHD [29, 30]. Η κυριαρχία στα κόπρανα από ευκαιριακά παθογόνα Enterococcus και Proteobacteria έχει επίσης συνδεθεί με αυξημένη GVHD [6, 31]. Τις τελευταίες δεκαετίες, έχει δοθεί αυξημένη προσοχή στη συσχέτιση μεταξύ της μικροχλωρίδας του εντέρου και της θεραπείας των MSCs σε ασθένειες φλεγμονής. Τα MSCs έχει αποδειχθεί ότι βελτιώνουν τη δυσβίωση της μικροχλωρίδας του εντέρου της ρευματοειδούς αρθρίτιδας, της σήψης και της φλεγμονώδους νόσου του εντέρου [32-34]. Για να διερευνήσουμε περαιτέρω τον μηχανισμό με τον οποίο τα hAMSCs βελτιώνουν το aGVHD, διερευνήσαμε την επίδραση των hAMSCs στη μικροχλωρίδα του εντέρου. Στην τρέχουσα μελέτη, η χορήγηση hAMSCs έδειξε σημαντική επίδραση στην ποικιλομορφία των μικροβιακών κοινοτήτων σε σύγκριση με τη μη μεταμόσχευση, υποδεικνύοντας ότι η αφθονία της μικροχλωρίδας του εντέρου θα μπορούσε να αλλάξει μετά τη θεραπεία με hAMSCs. Ωστόσο, δεν υπήρξε σημαντική διαφορά στις μετρήσεις της ποικιλομορφίας, πιθανώς λόγω των μικρών μεγεθών δειγμάτων και των δύο ομάδων ή του ανεπαρκούς κύκλου θεραπείας των hAMSC. Η ανάλυση χρησιμοποιώντας συγκριτικό χάρτη θερμότητας σε επίπεδα γένους έδειξε ότι η χορήγηση hAMSC αύξησε την αφθονία των ευεργετικών βακτηρίων, Odoribacter και Ruminococcus_1 στην εντερική χλωρίδα, τα οποία ήταν παραγωγοί λιπαρών οξέων βραχείας αλυσίδας (SCFAs) με αντιφλεγμονώδεις ιδιότητες [35 , 36]. Για τον εντοπισμό των υποκείμενων κυρίαρχων βακτηρίων με τη μεσολάβηση της μεταμόσχευσης hAMSCs, πραγματοποιήθηκε ανάλυση LEfSe μεταξύ των δύο ομάδων. Σε σύγκριση με την ομάδα aGVHD, η θεραπεία με hAMSCs αύξησε σημαντικά την αφθονία ορισμένων ευεργετικών μικροβίων που σχετίζονται με αντιφλεγμονώδη αποτελέσματα, όπως τα Lachnospiraceae, Roseburia, Ruminococcaceae, Ruminiclostridium, Oscillibacter, Clostridia, τα οποία όλα περιγράφηκαν ευεργετικά για την παραγωγή μικροβίων εντερικού μικροβιώματος. 37–42]. Επομένως, οι παρατηρήσεις μας έδειξαν ότι μετά τη χορήγηση hAMSC, η δυσβίωση της μικροχλωρίδας του εντέρου βελτιώθηκε, η οποία εκδηλώνεται από τη βελτιωμένη ποικιλομορφία και την αυξημένη σχετική αφθονία ωφέλιμων βακτηρίων.

Εικ. 6 Εναλλαγές μικροχλωρίδας του εντέρου σε ποντικούς aGVHD. (Α) σύγκριση της -ποικιλομορφίας. (Β) σύγκριση της -διαφορετικότητας. (Γ) Διάγραμμα Venn των OTU. (Δ) Σχετική αφθονία βακτηρίων σε επίπεδο φυλής. (Ε) Χάρτης θερμότητας αφθονίας ειδών σε επίπεδο γένους. (ΣΤ) Σχετική αφθονία Odoribacter σε επίπεδο γένους. (Ζ) Σχετικές αφθονίες Ruminococcus_1 σε επίπεδο γένους. (Η) Κλαδογράφημα με βάση την ανάλυση LEfSe. (I) Η βαθμολογία LDA υπολογίστηκε από χαρακτηριστικά που είναι διαφορικά άφθονα μεταξύ των ομάδων aGVHD και hAMSCs. (AI) n=3 ποντίκια ανά ομάδα. Οι τιμές παρουσιάστηκαν ως μέσος όρος±SD
Το aGVHD είναι μια περίπλοκη φλεγμονώδης διαδικασία που ξεκινά με την καταστροφή της ακεραιότητας του εντερικού φραγμού ακολουθούμενη από τη μετατόπιση της εντερικής μικροχλωρίδας και των συστατικών τους. Η αναγνώριση μοριακών μοτίβων που σχετίζονται με βλάβη και μοριακών μοτίβων που σχετίζονται με παθογόνο από κύτταρα που παρουσιάζουν αντιγόνο προκαλεί προφλεγμονώδη απόκριση, συμπεριλαμβανομένης της ενεργοποίησης των Τ κυττάρων και της καταιγίδας κυτοκίνης για να επιδεινώσει τη βλάβη του εντερικού φραγμού και να προωθήσει την ανάπτυξη της aGVHD [24, 43]. Από την άλλη πλευρά, η μικροχλωρίδα του εντέρου και οι μεταβολίτες που προέρχονται από τη μικροχλωρίδα, όπως τα SCFAs παίζουν σημαντικό ρόλο στη διατήρηση της ακεραιότητας του εντερικού φραγμού και της εντερικής ομοιόστασης, καθώς και στη διαμόρφωση του ανοσοποιητικού συστήματος του βλεννογόνου και στην εξισορρόπηση της άμυνας του ξενιστή με μικροβιακά συστατικά και μεταβολίτες [24, 44] . Η ενδοεπικοινωνία μεταξύ του ξενιστή και της μικροχλωρίδας του εντέρου στον εντερικό φραγμό ρυθμίζει τις βλεννογονικές και συστημικές ανοσολογικές αποκρίσεις και, σε παθολογικές καταστάσεις, μπορεί να οδηγήσει σε GVHD [6, 45, 46]. Πρότεινε ότι η μικροχλωρίδα του εντέρου σχετίζεται στενά με την έκφραση των πρωτεϊνών σφιχτής σύνδεσης [47]. Η παρούσα μελέτη έδειξε ότι η έκφραση mRNA των TJs ZO-1 και Occludin συσχετίστηκε αρνητικά με τη σχετική αφθονία επιβλαβών βακτηρίων ενώ είχε θετική συσχέτιση με τα ευεργετικά βακτήρια, υποδεικνύοντας ότι η μικροχλωρίδα του εντέρου ήταν σημαντική για τη διατήρηση της ακεραιότητας του εντερικό φραγμό. Επιπλέον, η μικροχλωρίδα του εντέρου είναι επίσης πολύ σημαντική για τη διατήρηση του εντερικού ανοσοποιητικού φραγμού [47]. Παρατηρήσαμε ότι ορισμένα από τα ωφέλιμα βακτήρια συσχετίστηκαν αρνητικά με το ποσοστό των CD3+CD4+Τ κυττάρων, αλλά συσχετίστηκαν θετικά με το ποσοστό των Tregs. Εδώ, αποκαλύψαμε ότι τα ωφέλιμα βακτήρια, κυρίως παραγωγοί SCFA, συσχετίστηκαν αρνητικά με τις προφλεγμονώδεις κυτοκίνες αλλά θετικά συσχετίστηκαν με τις αντιφλεγμονώδεις κυτοκίνες, ενώ τα επιβλαβή βακτήρια συσχετίστηκαν αντίστροφα. Συνοπτικά, η σημαντική διαφορά στη μικροχλωρίδα του εντέρου μεταξύ των θεραπειών υποδηλώνει μια πλήρη εικόνα των αλληλεπιδράσεων μεταξύ της μικροχλωρίδας του εντέρου και του εντερικού φραγμού, της ανοσίας. Υπήρχαν ακόμη αρκετοί περιορισμοί που αξίζει να συζητηθούν στα πειράματά μας. Πρώτον, αν και η μελέτη μας διερεύνησε τις επιδράσεις των hAMSCs στην ανοσία, τον εντερικό φραγμό και τη μικροχλωρίδα του εντέρου στο aGVHD, ο υποκείμενος μηχανισμός πρέπει ακόμα να επαληθευτεί σε περαιτέρω μελέτη. Δεύτερον, η εξάντληση της μικροχλωρίδας του εντέρου και η μεταμόσχευση μικροχλωρίδας κοπράνων απαιτούνται για να αντιμετωπιστούν οι αιτιώδεις συσχετίσεις μεταξύ της μικροχλωρίδας του εντέρου, του εντερικού φραγμού και της ανοσίας. Τρίτον, δικαιολογείται περαιτέρω έρευνα που διερευνά την επίδραση των hAMSC στα SCFA που προέρχονται από μικροβία και άλλους μεταβολίτες. Συμπερασματικά, η έρευνά μας πρότεινε ότι τα hAMSCs ανακούφισαν την aGVHD προάγοντας την ομαλοποίηση της μικροχλωρίδας του εντέρου και ρυθμίζοντας τις αλληλεπιδράσεις μεταξύ της μικροχλωρίδας του εντέρου και του εντερικού φραγμού, της ανοσίας. Η μελέτη μας είναι η πρώτη που καθορίζει συστηματικά τις επιδράσεις και τους υποκείμενους μηχανισμούς των hAMSC που ρυθμίζουν τη μικροχλωρίδα του εντέρου και την εντερική ανοσία στην aGVHD.

Εικ. 7 Ανάλυση συσχέτισης μεταξύ της μικροχλωρίδας του εντέρου και της εντερικής ανοσίας. Η ανάλυση συσχέτισης του Spearman διεξήχθη μεταξύ της σχετικής αφθονίας 15 διαφορετικών μικροβίων του εντέρου (σε επίπεδο γένους) και του επιπέδου έκφρασης mRNA των TJs, του ποσοστού των ανοσοκυττάρων καθώς και της συγκέντρωσης κυτοκινών στα έντερα μεταξύ των δύο ομάδων. Οι τιμές του Spearman r κυμαίνονται από -0.5 (μπλε) έως 0.5 (κόκκινο)
βιβλιογραφικές αναφορές
1. Schmid, C. (2021). Ένα βήμα πιο κοντά στο GVL χωρίς GVHD. Blood, 137(19), 2565–2566. https://doi.org/10.1182/blood.2020010132
2. Chang, Y., Zhao, X., & Huang, X. (2018). Στρατηγικές για την ενίσχυση και τη διατήρηση των επιδράσεων κατά της λευχαιμίας χωρίς επιδείνωση της νόσου του μοσχεύματος έναντι του ξενιστή. Frontiers in Immunology, 9, 3041. https:// doi.org/10.3389/fmmu.2018.03041
3. Zhu, W., Winter, MG, Byndloss, MX, Spiga, L., Duerkop, BA, Hughes, ER, Büttner, L., de Lima Romão, E., Behrendt, CL, Lopez, CA, Sifuentes- Dominguez, L., Huf-Hardy, K., Wilson, RP, Gillis, CC, Tükel, Ç., Koh, AY, Burstein, E., Hooper, LV, Bäumler, AJ, & Winter, SE (2018). Η επεξεργασία ακριβείας της μικροχλωρίδας του εντέρου βελτιώνει την κολίτιδα. Nature, 553(7687), 208–211. https://doi.org/10.1038/nature25172
4. Zhao, L., Zhang, F., Ding, X., Wu, G., Lam, YY, Wang, X., Fu, H., Xue, X., Lu, C., Ma, J. , Yu, L., Xu, C., Ren, Z., Xu, Y., Xu, S., Shen, H., Zhu, X., Shi, Y., Shen, Q., … Zhang, C (2018). Τα βακτήρια του εντέρου που προωθούνται επιλεκτικά από διαιτητικές ίνες ανακουφίζουν τον διαβήτη τύπου 2. Science (Νέα Υόρκη, Νέα Υόρκη), 359(6380), 1151–1156. https:// doi.org/10.1126/science.aao5774
5. Shono, Y., & van den Brink, MRM (2018). Βλάβη μικροχλωρίδας του εντέρου σε αλλογενή μεταμόσχευση αιμοποιητικών βλαστοκυττάρων. Κριτικές για τη φύση. Cancer, 18(5), 283-295. https://doi.org/10.1038/ nrc.2018.10
6. Stafas, A., Burgos da Silva, M., & van den Brink, MRM (2017). Η εντερική μικροχλωρίδα σε αλλογενή μεταμόσχευση αιμοποιητικών κυττάρων και νόσο μοσχεύματος έναντι ξενιστή. Blood, 129(8), 927–933. https://doi.org/10.1182/blood-2016-09-691394
7. Wu, K., Yuan, Y., Yu, H., Dai, X., Wang, S., Sun, Z., Wang, F., Fei, H., Lin, Q., Jiang, H ., & Chen, T. (2020). Ο μικροβιακός μεταβολίτης του εντέρου, το Ν-οξείδιο της τριμεθυλαμίνης, επιδεινώνει την GVHD προκαλώντας πόλωση των μακροφάγων Μ1 σε ποντίκια. Blood, 136(4), 501–515. https://doi.org/10.1182/blood.2019003990
8. Mathewson, ND, Jenq, R., Mathew, AV, Koenigsknecht, M., Hanash, A., Toubai, T., Oravecz-Wilson, K., Wu, S., Sun, Y., Rossi, C ., Fujiwara, H., Byun, J., Shono, Y., Lindemans, C., Calafore, M., Schmidt, TM, Honda, K., Young, VB, Pennathur, S., … Reddy, P. (2016). Οι μεταβολίτες που προέρχονται από το μικροβίωμα του εντέρου ρυθμίζουν τη βλάβη των εντερικών επιθηλιακών κυττάρων και μετριάζουν τη νόσο του μοσχεύματος έναντι του ξενιστή. Nature Immunology, 17(5), 505-513. https://doi.org/10.1038/ni.3400
9. Dave, JR, Chandekar, SS, Behera, S., Desai, KU, Salve, PM, Sapkal, NB, Mhaske, ST, Dewle, AM, Pokare, PS, Page, M., Jog, A., Chivte , PA, Srivastava, RK, & Tomar, GB (2022). Τα ανθρώπινα μεσεγχυματικά βλαστοκύτταρα των ούλων διατηρούν τα αναπτυξιακά και τα ανοσοτροποποιητικά τους χαρακτηριστικά ανεξάρτητα από την ηλικία του δότη. Science Advances, 8(25), m6504. https://doi.org/10. 1126/sciadv.abm6504
10. Zhao, K., & Liu, Q. (2016). Η κλινική εφαρμογή των μεσεγχυματικών στρωματικών κυττάρων στη μεταμόσχευση αιμοποιητικών βλαστοκυττάρων. Journal of Hematology & Oncology, 9(1), 46. https://doi.org/ 10.1186/s13045-016-0276-z
11. Liu, Q., Huang, Q., Wu, H., Zuo, G., Gu, H., Deng, K., & Xin, H. (2021). Χαρακτηριστικά και θεραπευτικές δυνατότητες ανθρώπινων βλαστοκυττάρων που προέρχονται από αμνίον. International Journal of Molecular Sciences, 22(2), 970. https://doi.org/10.3390/ijms22020970
12. Li, J., Zhou, Z., Wen, J., Jiang, F., & Xia, Y. (2020). Τα ανθρώπινα αμνιακά μεσεγχυματικά βλαστοκύτταρα προάγουν την ενδογενή οστική αναγέννηση. Frontiers in Endocrinology, 11, 543623. https:// doi.org/10.3389/fendo.2020.543623
13. Díaz-Prado, S., Muiños-López, E., Hermida-Gómez, T., Cicione, C., Rendal-Vázquez, ME, Fuentes-Boquete, I., de Toro, FJ, Blanco, FJ ( 2011). Η ανθρώπινη αμνιακή μεμβράνη ως εναλλακτική πηγή βλαστοκυττάρων για την αναγεννητική ιατρική. ΔΙΑΦΟΡΕΤΙΚΟΤΗΤΑ-διάκριση; Research in Biological Diversity, 81(3), 162–171. https:// doi.org/10.1016/j.dif.2011.01.005
14. Hong, J., Gao, Y., Song, J., Zhuo, W., Sun, H., & Ping, B. (2016). Σύγκριση βιολογικών χαρακτηριστικών και ανοσοκατασταλτικής δράσης μεταξύ ανθρώπινων αμνιακών μεσεγχυματικών βλαστικών κυττάρων και ανθρώπινου μεσεγχυματικού μυελού των οστών. Zhongguo Shi Yan Xue Ye Xue Za Zhi, 24(3), 858–864. https:// doi.org/10.7534/j.issn.1009-2137.041.03.2016
15. Gao, Y., Li, W., Bu, X., Xu, Y., Cai, S., Zhong, J., Du, M., Sun, H., Huang, L., He, Y ., Hu, X., Liu, Q., Jin, H., Wang, Q., & Ping, B. (2021). Τα ανθρώπινα αμνιακά μεσεγχυματικά βλαστοκύτταρα αναστέλλουν το aGVHD ρυθμίζοντας την ισορροπία των κυττάρων Treg και Τ εκτελεστών. Journal of Inflammation Research, 14, 3985–3999. https://doi.org/10.2147/ JIR.S323054
16. Cooke, KR, Kobzik, L., Martin, TR, Brewer, J., Delmonte, JJ, Crawford, JM, & Ferrara, JL (1996). Ένα πειραματικό μοντέλο συνδρόμου ιδιοπαθούς πνευμονίας μετά από μεταμόσχευση μυελού των οστών: I. Οι ρόλοι των ελάσσονων Η αντιγόνων και της ενδοτοξίνης. Blood, 88(8), 3230–3239.
17. Yañez, R., Lamana, ML, García-Castro, J., Colmenero, I., Ramírez, M., & Bueren, JA (2006). Τα μεσεγχυματικά βλαστοκύτταρα που προέρχονται από λιπώδη ιστό έχουν in vivo ανοσοκατασταλτικές ιδιότητες που ισχύουν για τον έλεγχο της νόσου μοσχεύματος έναντι ξενιστή. Stem Cells (Dayton, Οχάιο), 24(11), 2582–2591.
18 Hooper, LV, Littman, DR, & Macpherson, AJ (2012). Αλληλεπιδράσεις μεταξύ της μικροχλωρίδας και του ανοσοποιητικού συστήματος. Science (Νέα Υόρκη, Νέα Υόρκη), 336(6086), 1268–1273. https://doi.org/10.1126/ science.1223490
19. Kelly, K., & Rasko, JEJ (2021). Μεσεγχυματικά στρωματικά κύτταρα για τη θεραπεία της νόσου μοσχεύματος έναντι ξενιστή. Frontiers in Immunology, 12, 761616. https://doi.org/10.3389/fmmu.2021.761616
20. Macías-Sánchez, MDM, Morata-Tarifa, C., Cuende, N., Cardesa-Gil, A., Cuesta-Casas, M. Á., Pascual-Cascon, MJ, Pascual, A., Martín-Calvo , C., Jurado, M., Perez-Simón, JA, Espigado, I., Garzón López, S., Carmona Sánchez, G., Mata-Alcázar-Caballero, R., & Sánchez-Pernaute, R. (2022 ). Μεσεγχυματικά στρωματικά κύτταρα για τη θεραπεία οξείας και χρόνιας νόσου μοσχεύματος έναντι του ξενιστή ανθεκτικής στα στεροειδή: Μια πολυκεντρική εμπειρία συμπονετικής χρήσης. Stem Cells Translational Medicine, 11(4), 343-355. https://doi.org/10.1093/ stcltm/szac003
21. Tago, Y., Kobayashi, C., Ogura, M., Wada, J., Yamaguchi, S., Yamaguchi, T., Hayashi, M., Nakaishi, T., Kubo, H., & Ueda, Υ. (2021). Τα ανθρώπινα μεσεγχυματικά βλαστοκύτταρα που προέρχονται από το αμνίον εξασθενούν την ξενογενή νόσο μοσχεύματος έναντι ξενιστή αποτρέποντας την ενεργοποίηση και τον πολλαπλασιασμό των Τ κυττάρων. Scientifc Reports, 11(1), 2406. https://doi. org/10.1038/s41598-021-81916-y
22. Yamahara, K., Harada, K., Ohshima, M., Ishikane, S., Ohnishi, S., Tsuda, H., Otani, K., Taguchi, A., Soma, T., Ogawa, H ., Katsuragi, S., Yoshimatsu, J., Harada-Shiba, M., Kangawa, K., & Ikeda, T. (2014). Σύγκριση αγγειογενετικών, κυτταροπροστατευτικών και ανοσοκατασταλτικών ιδιοτήτων ανθρώπινων μεσεγχυματικών βλαστοκυττάρων που προέρχονται από αμνίο και χόριο. PLoS One, 9(2), e88319. https:// doi.org/10.1371/journal.pone.0088319
23. Yamahara, K., Hamada, A., Soma, T., Okamoto, R., Okada, M., Yoshihara, S., Yoshihara, K., Ikegame, K., Tamaki, H., Kaida, K ., Inoue, T., Ohsugi, Y., Nishikawa, H., Hayashi, H., Ito, YM, Iijima, H., Ohnishi, S., Hashimoto, D., Isoe, T., … Fujimori, Y (2019). Ασφάλεια και αποτελεσματικότητα μεσεγχυματικών βλαστοκυττάρων που προέρχονται από αμνίο (AM01) σε ασθενείς με ανθεκτική σε στεροειδή οξεία νόσο μοσχεύματος έναντι ξενιστή μετά από αλλογενή μεταμόσχευση αιμοποιητικών βλαστοκυττάρων: ένα πρωτόκολλο μελέτης για μια ιαπωνική δοκιμή φάσης Ι/ΙΙ. BMJ Open, 9(7), e26403. https://doi.org/10.1136/bmjop en{12}}
24. Lin, D., Hu, B., Li, P., Zhao, Y., Xu, Y., & Wu, D. (2021). Οι ρόλοι της εντερικής μικροχλωρίδας και των μικροβιακών μεταβολιτών στην οξεία GVHD. Experimental Hematology & Oncology, 10(1), 49. https:// doi.org/10.1186/s40164-021-00240-3
25. Ghimire, S., Weber, D., Mavin, E., Wang, XN, Dickinson, AM, & Holler, E. (2017). Παθοφυσιολογία της GvHD και άλλων σημαντικών επιπλοκών που σχετίζονται με HSCT. Frontiers in Immunology, 8, 79. https://doi.org/10.3389/fmmu.2017.00079
26. Xu, J., Wang, X., Chen, J., Chen, S., Li, Z., Liu, H., Bai, Y., & Zhi, F. (2020). Τα μεσεγχυματικά βλαστοκύτταρα που προέρχονται από εμβρυϊκά βλαστοκύτταρα προάγουν την ακεραιότητα και την αναγέννηση του επιθηλίου του παχέος εντέρου αυξάνοντας τον κυκλοφορούντα IGF-1 σε ποντικούς με κολίτιδα. Theranostics, 10(26), 12204– 12222. https://doi.org/10.7150/thno.47683
27. Zhao, Y., Huang, J., Li, T., Zhang, S., Wen, C., & Wang, L. (2022). Το Berberine βελτιώνει το aGVHD με αναδιαμόρφωση της μικροχλωρίδας του εντέρου, καταστολή σήματος TLR4 και επιδιόρθωση του φραγμού του παχέος εντέρου για την αναστολή του φλεγμονώδους NLRP3. Journal of Cellular and Molecular Medicine, 26(4), 1060-1070. https://doi.org/10. 1111/jcmm.17158
28. Yuan, M., Lin, L., Cao, H., Zheng, W., Wu, L., Zuo, H., Tian, X., & Song, H. (2022). Η εντερική μικροχλωρίδα συμμετέχει στην προστατευτική δράση των HO-1/BMMSC στη μεταμόσχευση ήπατος με στεατωτικά μοσχεύματα ήπατος σε αρουραίους. Frontiers in Microbiology, 13, 905567. https://doi.org/10.3389/fmicb.2022.905567
29. Taur, Y., Jenq, RR, Perales, M., Littmann, ER, Morjaria, S., Ling, L., No, D., Gobourne, A., Viale, A., Dahi, PB, Ponce , DM, Barker, JN, Giralt, S., van den Brink, M., & Pamer, EG (2014). Οι επιδράσεις της βακτηριακής ποικιλότητας του εντερικού σωλήνα στη θνησιμότητα μετά από αλλογενή μεταμόσχευση αιμοποιητικών βλαστοκυττάρων. Blood, 124(7), 1174–1182. https://doi.org/10.1182/ αίμα-2014-02-554725
30. Jenq, RR, Taur, Y., Devlin, SM, Ponce, DM, Goldberg, JD, Ahr, KF, Littmann, ER, Ling, L., Gobourne, AC, Miller, LC, Docampo, MD, Peled, JU, Arpaia, N., Cross, JR, Peets, TK, Lumish, MA, Shono, Y., Dudakov, JA, Poeck, H., … van den Brink, MRM (2015). Η εντερική Blautia σχετίζεται με μειωμένο θάνατο από τη νόσο του μοσχεύματος έναντι του ξενιστή. Biology of Blood and Marrow Transplantation: Journal of the American Society for Blood and Marrow Transplantation, 21(8), 1373–1383. https://doi.org/10.1016/j.bbmt.2015.04.016
31. Le Bastard, Q., Chevallier, P., & Montassier, E. (2021). Εντερικό μικροβίωμα σε αλλογενή μεταμόσχευση αιμοποιητικών βλαστοκυττάρων και συγκεκριμένες αλλαγές που σχετίζονται με οξεία νόσο μοσχεύματος έναντι ξενιστή. World Journal of Gastroenterology, 27(45), 7792-7800. https:// doi.org/10.3748/wjg.v27.i45.7792
32. Li, X., Lu, C., Fan, D., Lu, X., Xia, Y., Zhao, H., Xu, H., Zhu, Y., Li, J., Liu, H ., & Xiao, C. (2020). Τα ανθρώπινα ομφαλικά μεσεγχυματικά βλαστοκύτταρα εμφανίζουν θεραπευτικό δυναμικό στη ρευματοειδή αρθρίτιδα ρυθμίζοντας τις αλληλεπιδράσεις μεταξύ της ανοσίας και της μικροχλωρίδας του εντέρου μέσω του υποδοχέα υδρογονάνθρακα αρυλίου. Frontiers in cell and developmental biology, 8, 131. https://doi.org/10.3389/fcell.2020.00131
33. Sun, J., Ding, X., Liu, S., Duan, X., Liang, H., & Sun, T. (2020). Τα μεσεγχυματικά βλαστοκύτταρα που προέρχονται από το λίπος εξασθενούν την οξεία πνευμονική βλάβη και βελτιώνουν τη μικροχλωρίδα του εντέρου σε σηπτικούς αρουραίους. Stem Cell Research & Therapy, 11(1), 384. https://doi.org/10.1186/ s13287-020-01902-5
34. Soontararak, S., Chow, L., Johnson, V., Coy, J., Wheat, W., Regan, D., & Dow, S. (2018). Μεσεγχυματικά βλαστοκύτταρα (MSC) που προέρχονται από επαγόμενα πολυδύναμα βλαστοκύτταρα (iPSC) ισοδύναμα με MSC προερχόμενα από λιπώδη ιστό για την προώθηση της εντερικής επούλωσης και της ομαλοποίησης του μικροβιώματος σε μοντέλο φλεγμονώδους νόσου του εντέρου σε ποντίκια. Stem Cells Translational Medicine, 7(6), 456-467. https://doi.org/ 10.1002/sctm.17-0305
35. Li, J., Zou, C., & Liu, Y. (2022). Βελτίωση της τροφικής αλλεργίας που προκαλείται από ωοαλβουμίνη σε ποντίκια με στοχευμένη χορήγηση κυανιδίνης-3-Ο-γλυκοζίτη από το ορθό και το κόλον. Foods (Basel, Switzerland), 11(11), 1542. https://doi.org/10.3390/foods11111542
36. Maruyama, S., Matsuoka, T., Hosomi, K., Park, J., Nishimura, M., Murakami, H., Konishi, K., Miyachi, M., Kawashima, H., Mizuguchi, K ., Kobayashi, T., Ooka, T., Yamagata, Z., & Kunisawa, J. (2022). Ταξινόμηση της εμφάνισης δυσλιπιδαιμίας με βάση τα βακτήρια του εντέρου που σχετίζονται με την πρόσληψη κριθαριού. Frontiers in Nutrition, 9, 812469. https://doi.org/10.3389/fnut.2022.812469
37. Lee, SH, Park, H., Kang, CD, Choi, DH, Park, SC, Park, JM, Nam, S., Chae, GB, Lee, KY, Cho, H., & Lee, SJ ( 2022). Η ενδομυϊκή συμπλήρωση υψηλής δόσης βιταμίνης D3 επηρεάζει τη μικροχλωρίδα του εντέρου ασθενών με λοίμωξη από clostridioides difcile. Frontiers in Cellular and Infection Microbiology, 12, 904987. https://doi.org/10.3389/fcimb.2022.904987
38. Meyer, RK, Lane, AI, Weninger, SN, Martinez, TM, Kangath, A., Laubitz, D., & Duca, FA (2022). Η ολιγοφρουκτόζη αποκαθιστά τα μεταγευματικά επίπεδα λιπαρών οξέων βραχείας αλυσίδας κατά τη διάρκεια σίτισης με υψηλή περιεκτικότητα σε λιπαρά. Obesity (Silver Spring, Md.), 30(7), 1442–1452. https://doi.org/ 10.1002/oby.23456
39. Sang, J, Zhuang, D, Zhang, T, Wu, Q, Yu, J, Zhang, Z (2022) Συγκλίνουσα και αποκλίνουσα ηλικιακή διαμόρφωση της ποικιλότητας της μικροχλωρίδας του εντέρου σε ανθρώπους και μη ανθρώπινα πρωτεύοντα. M-Systems: e151221. https:// doi.org/10.1128/msystems.01512-21
40. Ge, X., He, X., Liu, J., Zeng, F., Chen, L., Xu, W., Shao, R., Huang, Y., Farag, MA, Capanoglu, E. , El-Seedi, HR, Zhao, C., & Liu, B. (2022). Βελτίωση του διαβήτη τύπου 2 με το νέο 6, 8-συντονισμός γουανιδυλλουτεολίνης κινόνης-χρωμίου μέσω βιοχημικών μηχανισμών και αλληλεπίδρασης της μικροχλωρίδας του εντέρου. Journal of Advanced Research, S2090–1232(22), 121–129. https://doi.org/ 10.1016/j.jare.2022.06.003
41. Ding, Q., Cao, F., Lai, S., Zhuge, H., Chang, K., Valencak, TG, Liu, J., Li, S., & Ren, D. (2022). Ο Lactobacillus plantarum ZY08 ανακουφίζει από τη χρόνια ηπατική στεάτωση και ηπατική βλάβη που προκαλείται από το αλκοόλ σε ποντίκια μέσω της αποκατάστασης της ομοιόστασης των εντερικών βημάτων. Food Research International (Οττάβα, Οντ.), 157, 111259. https://doi.org/10. 1016/j.foodres.2022.111259
42. Rees, NP, Shaheen, W., Quince, C., Tselepis, C., Horniblow, RD, Sharma, N., Beggs, AD, Iqbal, TH, & Quraishi, MN (2022). Μια συστηματική ανασκόπηση των προγνωστικών βιοδεικτών του δότη και του λήπτη της ανταπόκρισης στη μεταμόσχευση μικροχλωρίδας κοπράνων σε ασθενείς με ελκώδη κολίτιδα. EBioMedicine, 81, 104088. https:// doi.org/10.1016/j.ebiom.2022.104088
43. Li, A., Abraham, C., Wang, Y., & Zhang, Y. (2020). Νέες ιδέες για τη βασική βιολογία της οξείας νόσου μοσχεύματος έναντι ξενιστή. Haematologica, 105(11), 2540-2549. https://doi.org/10.3324/haematol. 2019.240291 44. Kayama, H., Okumura, R., & Takeda, K. (2020). Αλληλεπίδραση μεταξύ της μικροχλωρίδας, των επιθηλίων και των κυττάρων του ανοσοποιητικού στο έντερο. Annual Review of Immunology, 38, 23–48. https://doi.org/ 10.1146/Annu rev-immunol-070119-115104
45. Schluter, J., Peled, JU, Taylor, BP, Markey, KA, Smith, M., Taur, Y., Niehus, R., Stafas, A., Dai, A., Fontana, E., Amoretti , LA, Wright, RJ, Morjaria, S., Fenelus, M., Pessin, MS, Chao, NJ, Lew, M., Bohannon, L., Bush, A., … Xavier, JB (2020). Η μικροχλωρίδα του εντέρου σχετίζεται με τη δυναμική των κυττάρων του ανοσοποιητικού στους ανθρώπους. Nature, 588(7837), 303–307. https://doi.org/10.1038/ s41586-020-2971-8
46. Yang, J, Yang, H, Li, Y (2022) Οι τριπλές αλληλεπιδράσεις μεταξύ της μικροχλωρίδας του εντέρου, της μυκοβίωσης και της ανοσίας του ξενιστή. Κριτικές Κριτικές στην Επιστήμη των Τροφίμων και τη Διατροφή: 1–21. https://doi.org/10.1080/10408 398.2022.2094888
47. An, J., Liu, Y., Wang, Y., Fan, R., Hu, X., Zhang, F., Yang, J., & Chen, J. (2022). Ο ρόλος του φραγμού του εντερικού βλεννογόνου στην αυτοάνοση νόσο: Ένας πιθανός στόχος. Frontiers in Immunology, 13, 871713. https://doi.org/10.3389/fmmu.2022.871713