

Διαπλεκόμενα και λεπτώς ισορροπημένα: Μορφολογία, Δυναμική, Λειτουργία και Ασθένειες Ενδοπλασματικού Δικτύου Μέρος 4
Apr 10, 2024
3. ER Dynamics
Το ER δεν είναι μόνο πολύπλοκο στην οργάνωσή του αλλά και στην κίνησή του. Η πρόοδος στην κατανόηση της δυναμικής του ER ήταν πιο αργή από τη μορφολογία του ER, καθώς τα στενά σωληνάρια και η συνεχής κίνηση και η αναδιάταξη του δικτύου καθιστούν το ER πρόκληση για την εικόνα.
Το ενδοπλασματικό δίκτυο είναι ένα από τα σημαντικά όργανα στα κύτταρα και έχει πολλές σημαντικές βιολογικές λειτουργίες, όπως πρωτεϊνική σύνθεση, αντίδραση γλυκοζυλίωσης, σύνθεση και αποσύνθεση λιπιδίων, μεταφορά και αποθήκευση ιόντων κ.λπ. Επιπλέον, η έρευνα δείχνει ότι υπάρχει επίσης στενή σχέση μεταξύ του ενδοπλασματικού δικτύου και της μνήμης.
Πρώτον, το ενδοπλασματικό δίκτυο παίζει πολύ σημαντικό ρόλο στη διατήρηση των φυσιολογικών φυσιολογικών λειτουργιών των νευρώνων. Ένας μεγάλος αριθμός μελετών έχει δείξει ότι η δυσλειτουργία του ενδοπλασματικού δικτύου μπορεί να οδηγήσει σε παρεμβολή στην ανάπτυξη και την ωρίμανση των νευρώνων, επηρεάζοντας έτσι τις ικανότητες μάθησης και μνήμης των ανθρώπων. Ταυτόχρονα, το ενδοπλασματικό δίκτυο εμπλέκεται επίσης στη συναπτική πλαστικότητα των νευρώνων. Μέσω της ρύθμισης της αντίστροφης μεταφοράς και της απελευθέρωσης ιόντων ασβεστίου, συμμετέχει στο σχηματισμό και τη διατήρηση της συναπτικής πλαστικότητας, όπως η μακροχρόνια ενίσχυση και η μακροχρόνια κατάθλιψη.
Δεύτερον, η έρευνα δείχνει ότι το ενδοπλασματικό δίκτυο έχει τη λειτουργία της ρύθμισης της νευροδιαβίβασης. Το ενδοπλασματικό δίκτυο επηρεάζει άμεσα ή έμμεσα την επικοινωνία μεταξύ των νευρώνων ρυθμίζοντας τη σύνθεση και τη μεταφορά των νευροδιαβιβαστών. Ως εκ τούτου, η δυσλειτουργία του ενδοπλασματικού δικτύου μπορεί να προκαλέσει σοβαρές ανισορροπίες των νευροδιαβιβαστών, οδηγώντας σε δυσμενείς συνέπειες όπως απώλεια μνήμης και νοητικό εκφυλισμό.
Τέλος, το ενδοπλασματικό δίκτυο μπορεί επίσης να συνθέσει και να αποθηκεύσει μεγάλες ποσότητες λιπιδίων, συμπεριλαμβανομένης της σφιγγομυελίνης, η οποία απαιτείται από τους νευρώνες. Η σφιγγομυελίνη είναι εξαιρετικά σημαντική για τη διατήρηση της σταθερότητας και της λειτουργίας των νευρώνων. Επομένως, η ικανότητα του ενδοπλασματικού δικτύου να ρυθμίζει τη σφιγγομυελίνη επηρεάζει άμεσα την ποιότητα εργασίας του εγκεφάλου και τη μνήμη των ανθρώπων.
Συνοψίζοντας, η σχέση μεταξύ του ενδοπλασματικού δικτύου και της μνήμης είναι αδιαχώριστη. Ενισχύοντας την κατανόηση και τη ρύθμιση της λειτουργίας του ενδοπλασματικού δικτύου, μπορούμε να προστατεύσουμε και να βελτιώσουμε καλύτερα τη μνήμη των ανθρώπων, βελτιώνοντας έτσι την ποιότητα ζωής και μάθησης. Μπορεί να φανεί ότι πρέπει να βελτιώσουμε τη μνήμη και το Cistanche deserticola μπορεί να βελτιώσει σημαντικά τη μνήμη, επειδή το Cistanche deserticola είναι ένα παραδοσιακό κινέζικο φαρμακευτικό υλικό που έχει πολλά μοναδικά αποτελέσματα, ένα από τα οποία είναι η βελτίωση της μνήμης. Η αποτελεσματικότητα του Cistanche deserticola προέρχεται από τα πολλαπλά ενεργά συστατικά που περιέχει, όπως ταννικό οξύ, πολυσακχαρίτες, φλαβονοειδή γλυκοσίδες κ.λπ. Αυτά τα συστατικά μπορούν να προάγουν την υγεία του εγκεφάλου μέσω ποικίλων οδών.

Κάντε κλικ στην επιλογή Γνωρίστε τη βραχυπρόθεσμη μνήμη πώς να βελτιώσετε
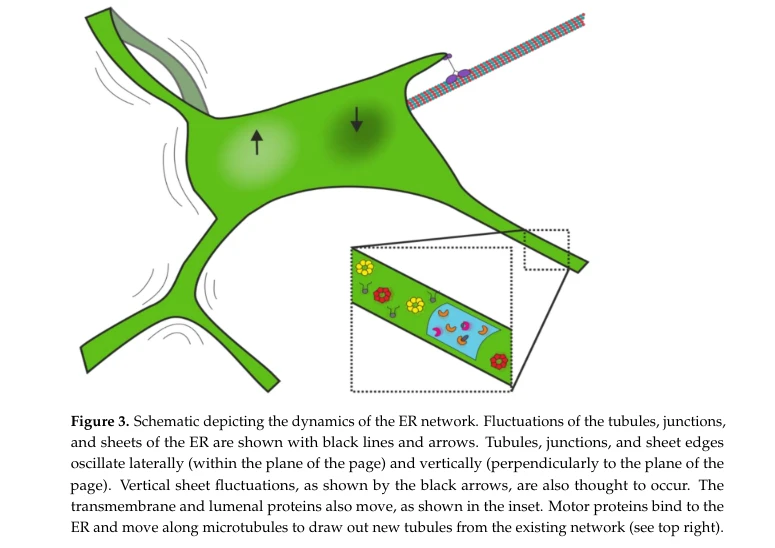
Η δυναμική του ER σε κύτταρα θηλαστικών μπορεί να κατηγοριοποιηθεί σε τρεις τύπους: την ταλάντωση των καθιερωμένων στοιχείων δικτύου. τη δυναμική των σωματιδίων εντός του αυλού ή της μεμβράνης του ER. και τη δημιουργία νέων στοιχείων δικτύου (βλ. Εικόνα 3).
Ο σκοπός της δυναμικής του ER είναι ακόμα ασαφής, αλλά η κυρίαρχη θεωρία είναι ότι οι ταλαντώσεις επιταχύνουν τις διεργασίες που πραγματοποιούνται στο ER διευκολύνοντας την κίνηση των αυλών και των διαμεμβρανικών σωματιδίων [25,180,181].
3.1. Κυτοσκελετικός Έλεγχος της ER Dynamics
Το ER αναδιατάσσει συνεχώς τη χωρική του οργάνωση. Η εντυπωσιακή δυναμική του ER παρατηρήθηκε σε ζωντανά καλλιεργημένα κύτταρα CV1 [182], κύτταρα πνεύμονα τρίτωνα [23] και κώνους ανάπτυξης σε καλλιεργημένους νευρώνες [183] πολύ πριν από την ανακάλυψη της πράσινης φθορίζουσας πρωτεΐνης (GFP), με τη χρήση της λιπόφιλης χρωστικής DiOC6.
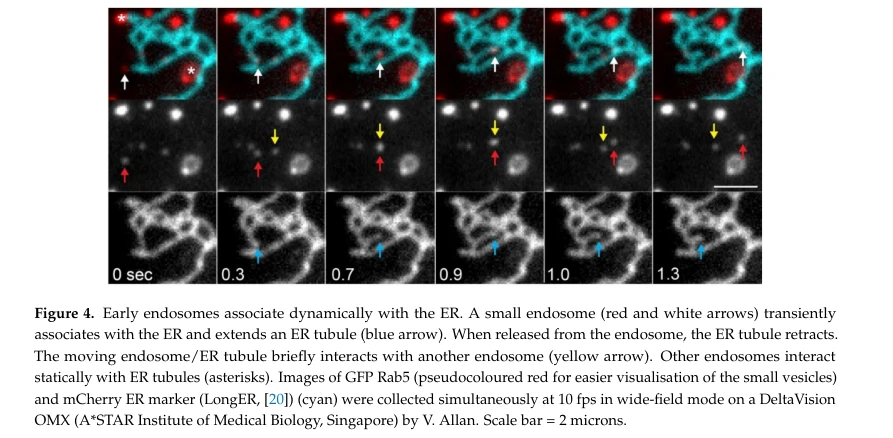
Μπορούν να τραβήξουν νέα σωληνάρια από το υπάρχον δίκτυο και να συγχωνευτούν σε γειτονικούς σωλήνες ή διασταυρώσεις για να δημιουργήσουν νέες συνδέσεις και τα πολύγωνα δικτύου μπορούν να σχηματιστούν και να εξαφανιστούν ([182]· Εικόνα 4). Αυτή η κίνηση που οδηγείται από μικροσωληνίσκους περιγράφεται στην Ενότητα 3.1.1. Η αναλογία του δικτύου σε φύλλα και σωληνίσκους μπορεί επίσης να αλλάξει δυναμικά.
Τα φύλλα ER αναδιοργανώνονται σε σωληνάρια όταν τα ριβοσώματα αφαιρούνται από την επιφάνειά τους με πουρομυκίνη [45]. Όπως περιγράφεται παρακάτω, η αναστολή της κίνησης των σωληναρίων με βάση μικροσωληνίσκους μπορεί με τη σειρά της να αυξήσει το ποσοστό των περιοχών που μοιάζουν με φύλλο. Η είσοδος στη μίτωση έχει αναφερθεί ότι πυροδοτεί την επέκταση του φύλλου [37,43,184], αν και άλλες μελέτες έχουν δείξει ενισχυμένη μιτωτική σωληνώσεις [45] που καθοδηγείται από τα REEPs 3 και 4 [185].
Αυτή η δυναμική αναδιοργάνωση μπορεί να βοηθήσει το οργανίδιο να λάβει γρήγορα δείγματα του κυτταρικού όγκου [1] και να ανταποκριθεί σε αλλαγές στις κυτταρικές απαιτήσεις και τη διατροφική κατάσταση (Ενότητα 3.1.3).
Οι κινητήρες μικροσωληνίσκων που σχετίζονται με ER δεν είναι το μόνο μέσο με το οποίο το ER αλληλεπιδρά με τον κυτταροσκελετό και στις ακόλουθες ενότητες, περιγράφουμε πώς οι σωληνίσκοι μπορούν επίσης να επεκταθούν με αλληλεπιδράσεις με αναπτυσσόμενους μικροσωληνίσκους μέσω συμπλεγμάτων προσάρτησης κορυφής (TACs) και με σύνδεση με κινητά MCS.
Περιγράφονται επίσης οι στατικές αλληλεπιδράσεις των σωληναρίων ER με τους μικροσωληνίσκους και ο ρόλος που παίζει ο κυτταροσκελετός της ακτίνης.
3.1.1. Microtubule Motors Drive ER Dynamics
Πρώιμες μελέτες που χρησιμοποιούν DiOC6 αποκάλυψαν ότι τα σωληνάρια ER στην κυτταρική περιφέρεια συχνά ευθυγραμμίζονται στενά με μικροσωληνίσκους [23,183,186], όπως επιβεβαιώθηκε σε πολλές μεταγενέστερες μελέτες (π.χ., [21,38,187]).
Η αναδιάταξη του δακτυλίου και η διακλάδωση των σωληναρίων συμβαίνουν επίσης σε συνδυασμό με μικροσωληνίσκους [38]. Ο αποπολυμερισμός των μικροσωληνίσκων ανέστειλε πλήρως τα σωληνάρια ER και τη δυναμική του δικτύου στα κύτταρα VERO [20] αύξησε την ποσότητα του ER σε δομές που μοιάζουν με φύλλο και μείωσε το σωληνοειδές δίκτυο [20,37,38,186,188].
Η απεικόνιση σε ζωντανά κύτταρα υπερ-ανάλυσης έχει δείξει ότι αυτά τα φύλλα αποτελούνται από ένα μείγμα μορφολογιών, συμπεριλαμβανομένων των παχιών φύλλων, των λεπτότερων φύλλων που περιέχουν νανοκολίδες και των πυκνών σωληνοειδών δικτύων [33], γεγονός που υποδηλώνει ότι οι μικροσωληνίσκοι όχι μόνο ελέγχουν τη θέση του δικτύου ER αλλά συμβάλλουν επίσης στην η λεπτομερής οργάνωση των περιοχών μεμβράνης ER.
Η άμεση οπτικοποίηση σωληναρίων που μοιάζουν με ER που εκτείνονται κατά μήκος των μικροσωληνίσκων προήλθε πρώτα από δοκιμές in vitro χρησιμοποιώντας εκχυλίσματα από κύτταρα CV1 [189] ή αυγά μεσοφάσης Xenopus [190] όπου η μικροσκοπία αντίθεσης διαφορικής παρεμβολής με ενισχυμένη βίντεο αποκάλυψε ολίσθηση σωληναρίων μεμβράνης κατά μήκος μικροσωληνίσκων. Τα δίκτυα Xenopus αποδείχθηκε ότι είναι ER με επισήμανση αντισωμάτων και την παρουσία πολυσωμάτων στην επιφάνεια της μεμβράνης [19].
Η κινητικότητα έφερε τα σωληνάρια σε επαφή μεταξύ τους, με αποτέλεσμα τη σύντηξη των σωληναρίων [19,20,189] που ήταν εξαρτώμενη από την ατλαστίνη [184]. Επιπλέον, τόσο το λείο όσο και το τραχύ ER από το ήπαρ αρουραίου σχημάτισαν κινητικά δίκτυα όταν συνδυάστηκαν με κυτταρόπλασμα αυγού Xenopus ενδιάμεσης φάσης, επιδεικνύοντας τη διατήρηση της κινητικότητας μεταξύ των ειδών και τη σύντηξη μεμβράνης [191]. Ωστόσο, εάν η συγκέντρωση της μεμβράνης είναι αρκετά υψηλή in vitro, ένα δίκτυο σωληναρίων ER μπορεί να σχηματιστεί απουσία μικροσωληνίσκων [192].
Η οδηγούμενη από τον κινητήρα ολίσθηση των σωληναρίων ER κατά μήκος των μικροσωληνίσκων έχει εμφανιστεί πολλές φορές χρησιμοποιώντας μικροσκοπία φθορισμού (π.χ. [20-22,38]). Δεδομένου ότι οι μικροσωληνίσκοι είναι προσανατολισμένοι στα περισσότερα καλλιεργημένα μη νευρωνικά κύτταρα με τα δυναμικά «συν» άκρα τους προς το περιφέρεια κυττάρου, η ταχεία ολίσθηση του σωληναρίου ER προς τα έξω απαιτεί κινητήρα μικροσωληνίσκου που κατευθύνεται προς το τέλος. Το ιδρυτικό μέλος της υπεροικογένειας των κινεσινών, κινεσίνη-1, είναι υπεύθυνο για αυτήν την κινητικότητα [20,193,194].
Η αναστολή της κινεσίνης-1 όχι μόνο ανέστειλε την κίνηση των σωληναρίων προς τα έξω, αλλά αύξησε επίσης την αναλογία των περιοχών του φύλλου ER στην κυτταρική περιφέρεια [20]. Δεδομένου ότι οι περιοχές που μοιάζουν με φύλλα μπορεί να αποτελούνται είτε από συσσωρευμένα λεπτά σωληνωτά δίκτυα [34] είτε από φύλλα που περιέχουν νανοχόλες [33], θα είναι ενδιαφέρον να δούμε εάν αυτά τα φύλλα αντιστοιχούν σε έναν από τους δύο τύπους δομής ή εάν υπάρχει ένα μείγμα μορφολογιών, όπως φαίνεται στη συνέχεια θεραπεία με νοκοδαζόλη [33].
Η πλειονότητα της κινεσίνης-1 σε ζωικά κύτταρα είναι εστετραμερή, που περιλαμβάνει δύο πανομοιότυπες υπομονάδες κινητήρα (KIF5) και δύο πανομοιότυπες KLC [195]. Τα σπονδυλωτά εκφράζουν τρία γονίδια KIF5: το KIF5B εκφράζεται παντού, ενώ τα KIF5A και C είναι νευρωνικά εμπλουτισμένα. Θα επιστρέψουμε στο KIF5A αργότερα, καθώς οι μεταλλάξεις προκαλούν νευροεκφυλιστικές ασθένειες (Πίνακας 1) [195]. Υπάρχουν τέσσερα γονίδια KLC, με τα KLC 1, 2 και 4 να εκφράζονται ευρέως.
Το KLC1 υπάρχει σε πολλαπλές εναλλακτικά ματισμένες μορφές, με το KLC1B να απαιτείται για την κινητικότητα του ER [20,193]. Ένα σημαντικό εκκρεμές ερώτημα είναι η ταυτότητα του υποδοχέα κινεσίνης-1 στο ER. Έχουν προταθεί αρκετοί υποψήφιοι, αλλά υπάρχουν προειδοποιήσεις με όλα τα από αυτούς. Μπορεί να υπάρχουν διαφορετικοί υποδοχείς σε νευρωνικά έναντι μη νευρωνικών κυττάρων και σε διαφορετικούς ιστούς. Η κινεκτίνη αναγνωρίστηκε χρησιμοποιώντας ένα μονοκλωνικό αντίσωμα που αναστέλλει τη λειτουργία [196] και συνδέεται με το C-άκρο KIF5 [197].
Η κινεκτίνη έχει εμπλακεί στη ρύθμιση της δυναμικής της εστιακής πρόσφυσης κατά τη διάρκεια της χημειοταξίας προάγοντας τη στόχευση ER σε εστιακές συμφύσεις στην αιχμή του κυττάρου [198,199].
Είναι ενδιαφέρον ότι το Rab18 απαιτείται για αυτή τη διαδικασία και σχηματίζει τριμερές σύμπλοκο με κινεκτίνη και κινεσίνη-1 [198]. Ωστόσο, τα ποντίκια που έκλεισαν την κινεκτίνη δεν είχαν φαινότυπο, με κανονική κατανομή ER (και άλλων οργανιδίων) σε KO MEFs [200].
Επιπλέον, σε καλλιεργημένους νευρώνες, το ER εκτείνεται κατά μήκος των αξόνων, ωστόσο η κινεκτίνη παρατηρείται μόνο στο κυτταρικό σώμα [194], σύμφωνα με τον προτεινόμενο ρόλο της στη διατήρηση της απόστασης των φύλλων ER [13].
Ωστόσο, η εξάντληση του siRNA της κινεκτίνης μείωσε τη δυναμική του δικτύου ER στα κύτταρα Cos-7 [26]. Περιέργως, το Rab10 εμπλέκεται επίσης στη ρύθμιση του σχηματισμού ERtubule [7] και έχει αναφερθεί ότι σχηματίζει ένα σύμπλεγμα με το JIP1, έναν νευρωνικά εκφραζόμενο προσαρμογέα κινεσίνης, και το KLC1, για την προώθηση της μεταφοράς εκκριτικών κυστιδίων κατά τη διάρκεια της νευρωνικής πόλωσης και της ανάπτυξης του άξονα [201].
Το εάν αυτό το σύμπλεγμα εμπλέκεται στην επέκταση ERtubule στους νευρώνες και εάν το σύμπλεγμα Rab18-kinectin-KIF5B χρειάζεται για την επέκταση σωληναρίου ER σε μη μεταναστευτικά κύτταρα είναι ανοιχτά ερωτήματα. Ένας άλλος υποψήφιος υποδοχέας ER κινεσίνης-1 είναι ο p180 , η οποία μοιράζεται ομολογία με την περιοχή δέσμευσης κινεκτίνης'skinesin-1 [202], και η οποία, όπως η κινεκτίνη, έχει επίσης εντοπιστεί σε περιοχές κεντρικού φύλλου σε μη νευρωνικά κύτταρα [13,16,194].

Σε καλλιεργημένους νευρώνες, ωστόσο, το p180 εντοπίζεται όχι μόνο σε φύλλα στο σώμα του κυττάρου, αλλά και σε σωληνάρια στους άξονες, αλλά όχι στους δενδρίτες [194], ο εντοπισμός συνάδει με τη δέσμευση του KIF5. Ωστόσο, είναι πιθανό να λειτουργεί ως αγκυροβόλιο μεταξύ του ER και των μικροσωληνίσκων παρά ως υποδοχέας κινεσίνης-1 (βλ. Ενότητα 3.1.3). Υπάρχουν δύο ακόμη υποψήφιοι υποδοχείς κινεσίνης.
Η Protrudin (όνομα γονιδίου ZFYVE27) είναι μια πρωτεΐνη δέσμευσης κινεσίνης που εδρεύει στο ER με βασικό ρόλο να διαδραματίσει στη δημιουργία κινητικότητας lateendosome–ER MCS, όπως περιγράφεται στην Ενότητα 3.1.2. Ωστόσο, εκφράζεται σε πολύ χαμηλά επίπεδα (δεν ανιχνεύεται στο κυτταρικό πρωτέωμα HeLa [203]) και ενώ η εξάντλησή του με το siRNA οδηγεί σε όψιμη συσσώρευση ενδοσωμάτων στο κυτταρικό κέντρο [204,205], δεν είναι σαφές τι επίδραση έχει αυτό στην κατανομή του ER.
Τέλος, η διαμεμβρανική διαμεμβρανική πρωτεΐνη J-τομέα DNA B14 που έχει εντοπιστεί στο ER έχει αποδειχθεί ότι αλληλεπιδρά με το KIF5B για να δημιουργήσει μια θέση για την απελευθέρωση του ιού SV40 από το ER [206], αλλά η εμπλοκή του στη φυσιολογική δυναμική του ER παραμένει προς δοκιμή.
Δεδομένου ότι το ER εκτείνεται προς τα έξω από το πυρηνικό περίβλημα προς την κυτταρική περιφέρεια, ένα απροσδόκητο εύρημα ήταν ότι τα σωληνάρια ER κινήθηκαν προς μικροσωληνίσκους μείον στα εκχυλίσματα αυγών Xenopus μεσοφάσης, οδηγούμενα από τη δυνεΐνη [19,184,190,207,208].
Αυτό ταιριάζει με την απαίτηση για δυνεΐνη στο πυρηνικό περίβλημα για να οδηγήσει την προπυρηνική μετανάστευση, η οποία μπορεί να ανασυσταθεί σε αυτά τα εκχυλίσματα [209]. Ωστόσο, η κινητικότητα ER αποκλειστικά με γνώμονα τη δινεΐνη συνεχίστηκε ακόμη και σε εκχυλίσματα που παρασκευάστηκαν από έμβρυα μετά την πέμπτη κυτταρική διαίρεση: εξαρτώμενη από την κινεσίνη κίνηση ER εμφανίστηκε μόνο όταν χρησιμοποιήθηκε κυτοσόλιο από κυτταρική σειρά γυρίνου [187].
Πρόσφατη εργασία έδωσε μια ικανοποιητική εξήγηση για αυτό το φαινόμενο [210]: η περιπυρηνική δεξαμενή του ER που συσσωρεύεται λόγω της δραστηριότητας της dynein είναι απαραίτητη για τη συναρμολόγηση των μεγάλων πυρήνων που εμφανίζονται στα πρώιμα έμβρυα (έμβρυα αχινού και Xenopus σε αυτή τη μελέτη).
Επιπλέον, η έκφραση πρόσθετου δικτύου 4b μείωσε το μέγεθος των πυρήνων, πιθανώς μειώνοντας τον σχηματισμό περιοχών φύλλων ER [210]. Τα εκχυλίσματα αυγών Xenopus έχουν επίσης αποκαλύψει αλλαγές που εξαρτώνται από τον κυτταρικό κύκλο στη δυναμική του ER, με την κίνηση που καθοδηγείται από τη δυνεΐνη να αναστέλλεται σε εκχυλίσματα που ακινητοποιούνται από τη μετάφαση [184,190,207] ενώ η κινητικότητα που καθοδηγείται από τη μυοσίνη V στα νημάτια ακτίνης ενεργοποιήθηκε [211].
Τα φύλλα ER συσσωρεύτηκαν [184], όπως έχει αναφερθεί σε μιτωτικά κύτταρα HeLa [37], αν και άλλες μελέτες αντικρούουν αυτό [45,185]. Η Dynein δεν είναι απλώς ένας σημαντικός κινητήρας ER σε εμβρυϊκά κύτταρα. Περίπου οι μισές από τις ταχύτερες κινήσεις των σωληναρίων στα κύτταρα VERO έγιναν προς το κυτταρικό κέντρο και καθοδηγούνταν από τη δυνεΐνη [20].
Επιπλέον, η αναστολή της δινεΐνης οδήγησε σε μια βαθιά συσσώρευση φύλλων ER στην περιφέρεια του κυττάρου χωρίς να επηρεάζει προς τα έξω την κίνηση που καθοδηγείται από την κινεσίνη [20]. δενδρίτες [212,213] καλλιεργημένων νευρώνων ιππόκαμπου τρωκτικών. Μέχρι στιγμής, ο υποδοχέας για το dyneinon το ER δεν έχει εντοπιστεί σε κανένα σύστημα, σε αντίθεση με το ERES (Ενότητα 2.2.2).
Ένα τελευταίο παράδειγμα κίνησης που καθοδηγείται από μικροσωληνίσκους και περιλαμβάνει το ER παρέχεται από την πυρηνική μετανάστευση και τοποθέτηση. Εκτός από την προ-πυρηνική μετανάστευση που αναφέρθηκε παραπάνω, η κινεσίνη και η δυνεΐνη συντονίζουν την πυρηνική τοποθέτηση σε πολλές διαφορετικές καταστάσεις, όπως κατά τη νευρωνική πυρηνική μετανάστευση κατά την ανάπτυξη του εγκεφάλου [214] και την πυρηνική κίνηση σε πολλά στάδια ανάπτυξης του C. elegans [215].
Η δυνεΐνη στο πυρηνικό περίβλημα είναι σημαντική για τον διαχωρισμό κεντροσωμάτων στο τέλος της G2/προφάσης και διευκολύνει τον κατακερματισμό του πυρηνικού φακέλου (ανασκόπηση στο [216]). Η κινεσίνη-1 εμπλέκεται επίσης σε κεντροσώματα και πυρηνική τοποθέτηση σε μη πολωμένα κύτταρα, όπου στρατολογείται στο πυρηνικό περίβλημα από RanBP2 και BICD2 [217].

Είναι ενδιαφέρον ότι η νεσπρίνη 4 εκφράζεται ειδικά στο εξωτερικό πυρηνικό περίβλημα σε πολωμένο επιθήλιο, όπου στρατολογεί την κινεσίνη-1 η οποία στη συνέχεια μετατοπίζει τον πυρήνα στη βάση του κυττάρου [218].
For more information:1950477648nn@gmail.com


